 AIVITA
5-bob. Jinsiy ko‘payish va meyoz
Muallif: AIVITA
Shifokorlar bahosi: Shifokorlar hali baho bermagan
ⓘ Ma’lumot shifokor maslahatini almashtirmaydi. Tashxis va davolashni faqat shifokor belgilaydi.
Jinsiy ko‘payish ko‘pchilik ko‘p hujayrali organizmlar, jumladan inson uchun naslni davom ettirishning asosiy usuli hisoblanadi. Uning asosini meyoz — xromosomalar sonini ikki baravar kamaytiradigan va irsiy materialni qayta taqsimlaydigan maxsus hujayra bo‘linishi tashkil etadi. Meyoz va urug‘lanishning birgalikdagi ta’siri nasldan-naslga xromosomalar sonining doimiyligini ta’minlaydi hamda turning yashab qolishi uchun zarur genetik xilma-xillikni yaratadi. Meyozni tushunish irsiyat qonunlari (8-bobga qarang), xromosomal kasalliklar (13-bobga qarang) va hujayra sikli (4-bobga qarang) uchun zaruriy asos hisoblanadi.
1. Jinsiy va jinssiz ko‘payish
Ko‘payish — hayotning uzluksizligini ta’minlaydigan barcha tirik organizmlar uchun umumiy xususiyat. Ikki asosiy tur farqlanadi.
Jinssiz ko‘payish (reproductio asexualis) gametalar ishtirokisiz sodir bo‘ladi: yangi organizm ota-ona tanasining somatik hujayralaridan mitoz yo‘li bilan rivojlanadi (4-bobga qarang). Bu bo‘linish, kurtaklanish, parchalanish kabi usullar orqali amalga oshiriladi. Avlod genlari ota-onaning genlariga to‘liq o‘xshash bo‘ladi — klonlar.
Jinsiy ko‘payish (reproductio sexualis) gametalarning — xromosomalar soni ikki baravar kamaytirilgan maxsus jinsiy hujayralarning — hosil bo‘lishi va qo‘shilishini nazarda tutadi. Jinssiz ko‘payishdan ikkita asosiy farqi bor:
- Gametalar hosil bo‘lishida xromosomalar sonining kamayishi — meyoz.
- Gametalar qo‘shilishida xromosomalar sonining tiklanishi — urug‘lanish.
Jinsiy ko‘payishning biologik mohiyati — genetik jihatdan noyob individlarni yaratishdir. Har bir inson ota-onasidan meros bo‘lib qolgan allellarning takrorlanmas kombinatsiyasini o‘zida mujassam etadi, bu esa populyatsiyaning o‘zgaruvchanligini va tabiiy tanlanish uchun material mavjudligini ta’minlaydi.
2. Meyoz: umumiy tavsif
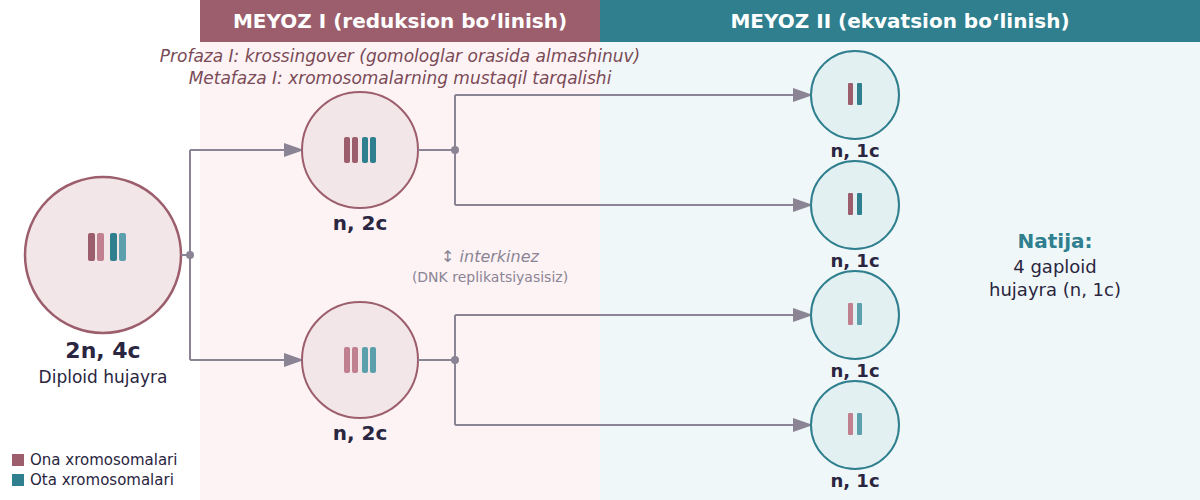
1-rasm. Meyozning ikki bo'linishi: bitta diploid hujayra (2n, 4c) dan to'rtta gaploid hujayra (n, 1c) hosil bo'ladi. Pushti — ona xromosomalari, zangori — ota xromosomalari. AIVITA sxemasi.
Meyoz (meiosis, yunoncha meioō — kamaytiraman) — bitta diploid hujayra (2n) dan to‘rtta gaploid hujayra (n) hosil bo‘ladigan va irsiy material qayta kombinatsiya qilinadigan hujayra bo‘linishi turi.
Meyoz ketma-ket ikkita bo‘linishdan iborat: reduktsion (meyoz I) va ekvatsion (meyoz II). Ular orasida to‘liq S-davri bo‘lmaydi, shuning uchun ikkinchi bo‘linishdan oldin DNK ikkilanmaydi.
Meyoz I boshlanishidan avval hujayra premeyotik interfazadan — DNK sintezini (S-davri) o‘z ichiga olgan bosqichdan — o‘tadi. Natijada 46 xromosomaning har biri kogesin oqsillari bilan tutashgan ikkita sisterlik xromatidadan iborat bo‘ladi. Umumiy to‘plam — 2n, 4c (46 xromosom, har biri ikkilangan). Mana shu ikkilangan material ikkita bo‘linish jarayonida taqsimlanadi.
Meyozning ikkita eng muhim natijasi:
- Xromosomalar to‘plamining kamayishi: 2n → n, bu jinsiy ko‘payishda xromosomalar sonining doimiyligini ta’minlaydi.
- Genetik rekombinatsiya: krossingover va xromosomalarning mustaqil tarqalishi hisobiga allellarning yangi kombinatsiyalari vujudga keladi.
Profaza I: meyozning asosiy stadiyasi
Profaza I — meyozning eng uzoq stadiyasi bo‘lib, uning umumiy vaqtining katta qismini egallaydi. Insonda spermatogenezdagi profaza I taxminan ikki hafta davom etadi. Aynan mana shu erda meyozni mitozdan tubdan farqlovchi jarayonlar sodir bo‘ladi. Profaza I beshta ketma-ket substadiyaga bo‘linadi.
Substadiyalarni tasvirlashdan oldin sinaptonemal kompleks tushunchasini kiritish muhim. Sinaptonemal kompleks (complexus synaptonemalis) — ikkita lateral element (har bir gomologik xromosomadan bittadan) va ularni bog‘lovchi ko‘ndalang iplardan iborat oqsil tuzilmasi. U gomologlarning aniq yaqinlashishini ta’minlaydi va krossingover uchun molekulyar platforma yaratadi. Paxinemaning tugashi bilan kompleks parchalanadi.
Leptonema (leptonema, yunoncha leptos — ingichka, nema — ip): xromosomalar kondensatsiyalana boshlaydi va yorug‘lik mikroskopi ostida ingichka iplar sifatida ko‘rinadi. Har bir xromosom allaqachon ikkita sisterlik xromatidadan iborat bo‘lib, ular sentromer orqali tutashgan, ammo hali bu ajrima ko‘rinmaydi.
Zigonema (zygonema, yunoncha zygon — juft): gomologik xromosomalar — bir xil genlarni tashuvchi, ammo turli ota-onalardan kelgan xromosomalar — yaqinlashib, butun uzunligi bo‘yicha juft-juft bo‘ladi. Bu jarayon sinaps (synapsis) deb ataladi; xromatidlar orasida oqsil tuzilmasi — sinaptonemal kompleks (complexus synaptonemalis) — shakllanadi. Juftlashgan gomologik xromosomalar (har biri ikkita xromatiddan iborat) bivalent yoki tetrada (chunki to‘rtta xromatid tutadi) deyiladi.
Paxinema (pachynema, yunoncha pachys — qalin): bivalent qisqarib qalinlashadi. Meyozning asosiy hodisasi sodir bo‘ladi — krossingover (crossing-over): gomologik xromosomalarning sisterlik bo‘lmagan xromatidlari orasida bo‘laklar almashinadi. Almashinuv joylarida kesishma nuqtalari — xiyazmalar (chiasmata) — shakllanadi. Har bir krossingover gomologlar orasida allellarni qayta taqsimlaydi va yangi gen kombinatsiyalarini yaratadi (molekulyar asosi 6-bobda batafsil ko‘rib chiqiladi).
Diplonema (diplonema, yunoncha diploos — ikkilik): sinaptonemal kompleks parchalanadi, gomologik xromosomalar ajrala boshlaydi, ammo xiyazmalar joylarida tutashib qoladi. Bivalentning to‘rtta xromatidi aniq ko‘rinadi. Insonda oogenezdagi diplonema homilaning rivojlanish davridan ovulyatsiya vaqtigacha davom etadi (quyidagi gametogenez bo‘limiga qarang).
Diakinez (diakinesis): xromosomalar maksimal kondensatsiyaga erishadi. Xiyazmalar xromosomalar uchlariga siljiydi (terminalizatsiya). Yadro qobig‘i parchalanadi, yadrocha g‘oyib bo‘ladi.
Metafaza I
Bivalent xromosomalar hujayra ekvatori bo‘ylab tiziladi. Mitozning metafazasidan asosiy farq: har bir kinetoxor sentromerining iplarini faqat bitta qutbdan keladigan spindle iplari bog‘laydi — gomologik xromosomalarning har birida ular qarama-qarshi qutblardan birikadi. Har bir juftdagi gomologlarning yo‘nalishi tasodifiy va boshqa juftlarning yo‘nalishidan mustaqil — xromosomalarning mustaqil tarqalishi asosi.
Anafaza I
Qutblarga butun gomologik xromosomalar (har biri hali ikkita xromatiddan iborat) tarqaladi. Sisterlik xromatidlar ajralmaydi — bu mitozning anafazasidan asosiy farq. Har bir qutbdagi xromosomalar soni gaploid (n) bo‘ladi, ammo DNK miqdori hali diploiddir (chunki har bir xromosom ikki xromatidli).
Telofaza I va sitokinez I
Ikki qiz hujayra hosil bo‘ladi, ularda gaploid miqdordagi ikki xromatidli xromosomalar bor. DNK sintezi bo‘lmagan qisqa interkinez (interfaza analogi) dan so‘ng meyoz II boshlanadi.
Meyoz II: ekvatsion bo‘linish
Meyoz II mitozga o‘xshash sxema bo‘yicha kechadi, ammo har ikki hujayrada gaploid miqdordagi ikki xromatidli xromosomalar mavjud.
- Profaza II: xromosomalar kondensatsiyalanadi, yadro qobig‘i parchalanadi. Bu faza profaza I ga nisbatan ancha qisqa.
- Metafaza II: xromosomalar ekvator bo‘ylab tiziladi, spindle iplari ikkala qutbdan kinetoxorlarga birikadi.
- Anafaza II: sisterlik xromatidlar ajralib qutblarga tarqaladi — mitozning anafazasidagi kabi.
- Telofaza II: to‘rtta gaploid hujayra hosil bo‘ladi, har birida bir xromatidli xromosomalar mavjud.
Natija: bitta diploid hujayra (2n, 4c) ikkita bo‘linishdan so‘ng to‘rtta gaploid hujayra (n, 1c) ga aylanadi.
3. Meyozda genetik xilma-xillik manbalari
Meyoz ikkita mustaqil mexanizm orqali genetik xilma-xillik yaratadi.
Krossingover (profaza I). Har bir bivalentda o‘rtacha bir yoki bir necha krossingover sodir bo‘ladi. Insonda spermatositlardagi meyozga taxminan 50–60 krossingover to‘g‘ri keladi. Har bir almashinuv bitta xromosom doirasida allellarni qayta joylashtiradi va yangi kombinatsiyalar yaratadi. Molekulyar jihatdan krossingover — sisterlik bo‘lmagan xromatidlar orasida zanjirlar almashinuvi bilan birga keladigan ikki zanjirli DNK uzilishi va uning tiklanishi (6-bobda batafsil ko‘rib chiqiladi). Muhim tomoni shundaki, bu jarayon xromatidlarning tuzilishini buzmasdan allellarni qayta taqsimlaydi.
Xromosomalarning mustaqil tarqalishi (metafaza I). Insonda 23 juft gomologik xromosom bor. Har bir juftning metafaza plastinkasidagi yo‘nalishi boshqa juftlarnikidan mustaqil. Nazariy jihatdan gametalarning xromosomal tarkibidagi turli kombinatsiyalar soni 2²³ ≈ 8 millionni tashkil etadi. Krossingover hisobga olinganda xilma-xillik bundan ham yuqori bo‘ladi.
Tasodifiy urug‘lanish — meyozdan mustaqil uchinchi mexanizm: taxminan 8 million genetik jihatdan turli spermatozoidlardan biri taxminan 8 million genetik jihatdan turli tuxum hujayralardan biri bilan uchrashuvi. Ikki aka-ukaning genetik jihatdan bir xil bo‘lish ehtimoli (bir tuxumdan chiqqan egizaklar bundan mustasno) amalda nolga teng.
4. Gametogenez
Gametogenez (gametogenesis) — voyaga yetgan gametalarning shakllanishiga olib keladigan hujayra bo‘linishlari va differensiatsiyasi majmuasi. Erkaklarda bu jarayon spermatogenez (spermatogenesis), ayollarda esa oogenez (oogenesis) deyiladi.
Gametogenez gipofizning gonadotrop gormonlari — follikulstimullovchi gormon (FSH — follicle-stimulating hormone) va lyuteinizirlovchi gormon (LH — luteinizing hormone) tomonidan boshqariladi. Erkaklarda FSH urug' kanalchalaridagi Sertoli hujayralarini rag‘batlantiradi va spermatogenezni qo‘llab-quvvatlaydi; LH esa testosteron sintez qiluvchi Leydig hujayralarini faollashtiradi — testosteron meyozning o‘tishi va spermatozoidlarning shakllanishi uchun zarur. Ayollarda FSH follikullarning o‘sishini rag‘batlantiradi va oositning yetilishini ta’minlaydi; sikl o‘rtasidagi LH cho‘qqisi meyoz I ning davom etishini va ovulyatsiyani ishga soladi. Gonadotrop boshqarishning buzilishi (gipopituitarizm, giperprolakinemiya) — ikkala jinsda ham bepushtlikning qaytarilishi mumkin bo‘lgan endokrin sabablaridan biri.
Spermatogenez
Spermatogenez moya (testis) ning buralma urug' kanalchalarida (tubuli seminiferi contorti) kechadi. U jinsiy balog‘at davridagi yoshi va erkaklik hayoti davomida uzluksiz davom etadi. To‘rtta zona ajratiladi.
Ko‘payish zonasi (zona proliferationis): spermatogoniyalar (spermatogonia) — diploid o‘zak hujayralar — mitoz yo‘li bilan bo‘linadi. Hujayralarning bir qismi o‘zak hujayra bo‘lib qolsa, bir qismi differensiatsiya yo‘liga kiradi. A tipidagi (zaxira va faol bo‘linuvchi) va B tipidagi (spermatogenezga kiruvchi) spermatogoniyalar farqlanadi.
O‘sish zonasi (zona incrementi): B tipidagi spermatogoniyalar kattalashib birlamchi spermatositlarga (spermatocytus primarius) aylanadi. Meyozga kirishdan oldin DNK replikatsiyasi (S-davri) sodir bo‘ladi va hujayralar 2n, 4c to‘plamiga ega bo‘ladi.
Yetilish zonasi (zona maturandi): birlamchi spermatositlar meyoz I dan o‘tib, ikkita ikkilamchi spermatosit (spermatocytus secundarius) hosil qiladi (n, 2c to‘plam). Keyin DNK qo‘shimcha replikatsiyasisiz meyoz II sodir bo‘lib, to‘rtta spermatida (spermatida, n, 1c) hosil bo‘ladi.
Shakllanish zonasi (spermiogenez) (spermiogenesis): spermatidalar bo‘linmasdan spermatozoidlarga (spermatozoa) morfologik jihatdan o‘zgaradi. Bu jarayonga yadro kondensatsiyasi, Golji kompleksidan akrosoma shakllanishi, flagellum hosil bo‘lishi va sitoplazmaning qisqarishi kiradi.
Natija: bitta birlamchi spermatositdan to‘rtta to‘laqonli spermatozoid hosil bo‘ladi.
Insonda spermatogenezning umumiy davomiyligi — B tipidagi spermatogoniyadan voyaga yetgan spermatozoidgacha — taxminan 64–74 kun. Moya kanalchalarining turli qismlarida bir vaqtning o‘zida minglab bunday sikl boradi, shuning uchun sog‘lom erkak har kuni o‘rtacha bir necha yuz million spermatozoid ishlab chiqaradi.
Oogenez
Insondagi oogenez spermatogenezga nisbatan bir qancha muhim xususiyatlarga ega.
Ko‘payish zonasi: oogoniyalar (oogonia) — diploid hujayralar — faqat homilaning rivojlanish davrida mitoz yo‘li bilan bo‘linadi. Tug‘ilishga qadar oogoniyalar to‘ldirilmaydi; yangi tug‘ilgan qiz bolaning tuxumdonlarida taxminan 1–2 million birlamchi oosit bor bo‘lib, ular meyoz I ning profazasiga — diplonema stadiyasiga — kirgan va to‘xtagan holda bo‘ladi. Yangi oositlar endi hosil bo‘lmaydi.
O‘sish zonasi: birlamchi oositlar o‘nlab yillar davomida diplonema holatida qoladi — ovulyatsiyaga qadar. Bu vaqt ichida ular ribosomalar, mRNK, oqsillar va sarig‘lik moddalar to‘plash uchun keskin kattalashadi.
Yetilish zonasi: lyuteinizirlovchi gormon ta’sirida oosit meyoz I ni davom ettiradi. Ammo bo‘linish assimetrik: deyarli butun sitoplazma ikkilamchi oositga (oocytus secundarius) o‘tadi, birinchi polar tanacha (corpusculum polaire primum) esa deyarli sitoplazmaga ega bo‘lmaydi.
Meyoz II boshlanadi, ammo metafaza II da to‘xtaydi. Shu holatda ikkilamchi oosit ovulyatsiya qiladi va bachadon naychasiga tushadi. Meyoz II faqat spermatozoid kirib borganida tugatiladi — voyaga yetgan tuxum hujayra va ikkinchi polar tanacha (corpusculum polaire secundum) hosil bo‘ladi.
Natija: bitta birlamchi oositdan — bitta voyaga yetgan tuxum hujayra va uchta polar tanacha.
Polar tanachalar — xromosom to‘plamiga ega, ammo faoliyat uchun yetarli sitoplazmasi bo‘lmagan hujayralar; vaqt o‘tishi bilan ular degeneratsiyaga uchraydi. Ularning biologik roli — o‘sish zonasida to‘plangan sitoplazmik resurslarni yo‘qotmasdan tuxum hujayraning gaploidligini ta’minlash. Aynan shu resurslar (mRNK, ribosomalar, mitoxondriyalar, o‘sish omillari) o‘z genomi ishga tushguniga qadar zigota va erta homilaning rivojlanishini ta’minlaydi (11-bobga qarang).
Spermatogenez va oogenezni solishtirish
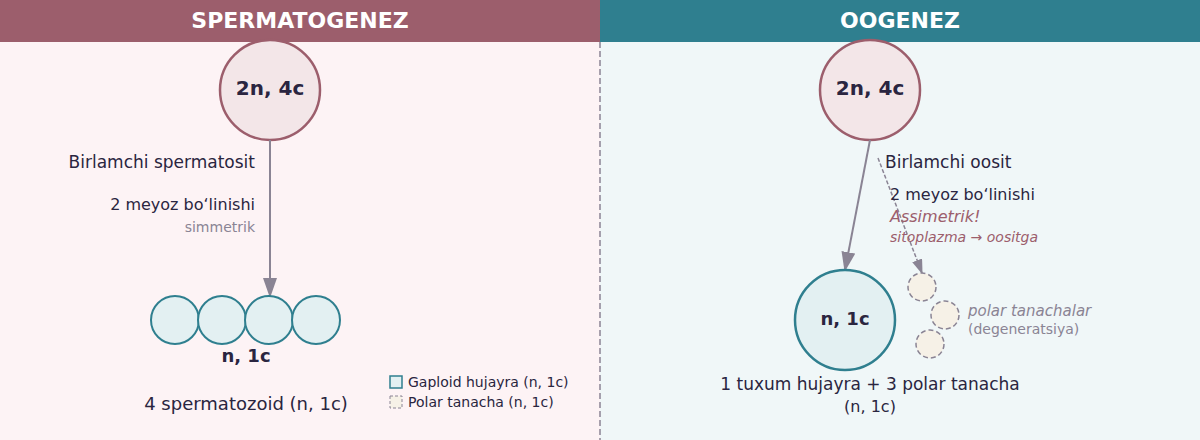
2-rasm. Spermatogenez va oogenez natijalarini solishtirish. Spermatogenezda bo'linish simmetrik — 4 teng hujayra hosil bo'ladi. Oogenezda bo'linish assimetrik — deyarli butun sitoplazma oositga o'tadi, polar tanachalar esa degeneratsiyaga uchraydi. AIVITA sxemasi.
| Belgi | Spermatogenez | Oogenez |
|---|---|---|
| Joyi | Moya buralma urug' kanalchalari | Tuxumdon follikulalari |
| Boshlanishi | Jinsiy balog‘at davri | Homiladorlik davri (oosit I) |
| Davomiyligi | Butun kattalar hayoti | Uzilishlari bor; ayrim oositlar — 40–50 yilgacha |
| Bo‘linishning assimetriyasi | Yo‘q (4 teng hujayra) | Bor (1 katta + 3 polar tanacha) |
| Natija | 1 spermatositdan 4 spermatozoid | 1 tuxum hujayra + 3 polar tanacha |
| Meyoz II tugashi | Urug‘lanishdan oldin | Spermatozoid kirib borganidan keyin |
| Gametaning sitoplazma hajmi | Kichik | Katta (erta homilani oziqlantirishga) |
5. Voyaga yetgan gametalarning tuzilishi
Spermatozoid
Voyaga yetgan spermatozoid (spermatozoon) uzunligi taxminan 55–65 mkm bo‘lgan yuqori darajada ixtisoslashgan hujayradir. Unda quyidagilar ajratiladi:
- Bosh (caput): kondensatsiyalangan gaploid yadro tutadi. Boshning old qismini akrosoma (acrosoma) — gidroliz fermentlarini (gialuronidaza, akrosin) saqlagan ixtisoslashgan lizosoma — qoplaydi. Akrosoma tuxum hujayrasining qobiqlaridan o‘tish uchun zarur.
- Bo‘yin (collum): boshni o‘rta bo‘limga ulaydi; proksimal sentrolyol joylashgan.
- O‘rta bo‘lim (pars media): flagellum aksonemasining bo‘ylab mitoxondriyalarning spirali joylashgan — harakat uchun ATF manbai.
- Flagellum (flagellum): harakatni ta’minlaydi; markaziy tuzilma — 9 + 2 mikrotubula joylashuviga ega aksonema (axonema).
Tuxum hujayra
Tuxum hujayra (ovum, yoki oocytus maturus) — tananing eng yirik hujayrasi; insondagi diametri taxminan 100–130 mkm. Tashqaridan hujayra quyidagilar bilan o‘ralgan:
- Shaffof qobiq (zona pellucida): spermatozoidlar uchun retseptorlar (jumladan ZP3) tutgan glikoprotein qatlam.
- Nurli toj (corona radiata): shaffof qobiqqa yaqin bir-ikki qavat follikul hujayralari.
Sitoplazmaning korteks qatlamida kortikal donachalar (granulae corticales) joylashgan: spermatozoid kirib borganida ular shaffof qobiq ostiga tarkibini chiqaradi, uning tarkibini o‘zgartiradi — kortikal reaksiya — va ko‘p spermatozoidlarning kirishini (polispermiyani) bloklaydi.
6. Urug‘lanish
Urug‘lanish (fecundatio) — erkak va ayol gametalarining qo‘shilishi va diploid xromosomalar to‘plamining tiklanishi. Bu hodisa odatda bachadon naychasining amPulyar qismida, ovulyatsiyadan keyin 12–24 soat ichida sodir bo‘ladi. Embrional oqibatlar 11-bobda batafsil ko‘rib chiqiladi; bu yerda muhim jihatlar quyidagilar:
- Oositning meyoz II si tugallanadi.
- Diploid kariotipli zigota (zygota) hosil bo‘ladi (onadan 23 xromosom + otadan 23 xromosom = 46).
- Genetik jins aniqlanadi: XX — ayollik, XY — erkaklik (9-bobga qarang).
7. Meyoz va mitozni solishtirish
| Belgi | Mitoz | Meyoz |
|---|---|---|
| Boshlang‘ich hujayra | Diploid (2n) | Diploid (2n) |
| Bo‘linishlar soni | 1 | 2 (meyoz I + meyoz II) |
| Qiz hujayralar | 2 diploid (2n) | 4 gaploid (n) |
| Gomologlarning konjugatsiyasi | Yo‘q | Bor (profaza I) |
| Krossingover | Deyarli yo‘q | Bor, majburiy (profaza I) |
| Anafaza I da tarqalish | Xromatidlar | Butun gomologik xromosomalar |
| Avlodning genetik xilma-xilligi | Yo‘q (klonlar) | Yuqori |
| Biologik roli | O‘sish, regeneratsiya, jinssiz ko‘payish | Gametalar hosil qilish |
Klinik ahamiyati
Meyozda xromosomalarning tarqalmasligi. Agar gomologlar (meyoz I da) yoki sisterlik xromatidlar (meyoz II da) ajralmasa, ortiqcha yoki kamroq xromosomali gametalar hosil bo‘ladi. Bunday gametani normal spermatozoid yoki tuxum hujayra bilan urug‘lantirishda aneuploidiyalar paydo bo‘ladi: trisomiyalar (masalan, 21-trisomiya — Daun sindromi) va monosomiyalar (masalan, 45,X — Shereshevskiy–Tyorner sindromi). Bu holatlar 13-bobda batafsil ko‘rib chiqiladi.
Ona yoshi va tarqalmaslik xavfi. Ayollardagi birlamchi oositlar o‘nlab yillar davomida profaza I ning "muzlatilgan" holatida — diplonema stadiyasida — qoladi. Oosit ovulyatsiyani qancha uzoq kutsa, sinaptonemal kompleks shikastlanishi va konjugatsiya buzilishi ehtimoli shuncha yuqori bo‘ladi. Bu 35 yoshdan oshgan onalarda 21-trisomiya chastotasining keskin ortishini tushuntiradi.
Spermatogenez nuqsonlari. Meyoz yoki spermatogenezning buzilishi (genetik, gormonal, toksik sabablar) azoo- yoki oligozoospermiaga — spermatozoidlar soni yoki sifatining pasayishiga olib keladi va erkak bepushtligining asosiy sabablaridan biri hisoblanadi.
Yordamchi reproduktiv texnologiyalar. Ekstrakorporal urug‘lantirishda (EKU) tuxum hujayralar ikkilamchi oosit (metafaza II) stadiyasida olinadi. Laboratoriyada urug‘lantirilgandan so‘ng meyoz II tugallanadi. Implantatsiyadan oldingi genetik diagnostika (PGD) tarqalmaslik natijasida yuzaga kelgan xromosom aneuploidiyalarini embrionni ko‘chirishdan oldin aniqlash imkonini beradi.
Genetik kartalashtirish. Meyozdagi rekombinatsiya (krossingover) tahlili xromosomalarda genlarning nisbiy joylashuvini aniqlash usuliga asos bo‘ladi (9-bobga qarang). Bu irsiy kasalliklarni aniqlashga mo‘ljallangan diagnostik DNK panellarini yaratishda qo‘llaniladi.
Akrosomal reaksiya va erkak bepushtligi. Akrosoma nuqsonlari yoki tuxum hujayraning shaffof qobig‘i bilan aloqada uning reaksiyasining buzilishi spermatozoidlar soni normal bo‘lganda ham urug‘lanishga to‘sqinlik qiladi. Spermatozoidlar morfologiyasini baholash — spermogrammaning majburiy tarkibiy qismi — akrosomal nuqsonlarni bepushtlikning sababi sifatida aniqlash imkonini beradi.
Kortikal reaksiyaning buzilishi. Kortikal donachalar yoki tuxum hujayrasining reseptor apparatida nuqsonlar bo‘lsa, kortikal reaksiya sodir bo‘lmasligi yoki to‘liq bo‘lmasligi mumkin, bu esa polispermiya — bir nechta spermatozoidning kirib borishi — uchun yo‘l ochadi. Polispermiya sabablaridan biri hisoblanadigan triploidiya (69 xromosom) erta o‘z-o‘zidan tushish (abort)ning keng tarqalgan sabablaridan biridir.
O‘z-o‘zini tekshirish uchun savollar
- Jinsiy ko‘payish jinssiz ko‘payishdan nimasi bilan tubdan farq qiladi? Har bir turning biologik mohiyati qanday?
- Meyozning jinsiy ko‘payish uchun ahamiyatli ikkita natijasini ayting.
- Profaza I ning qaysi substadiyasida krossingover sodir bo‘ladi va aynan nima almashtiriladi?
- Meyozning anafaza I dagi tarqalishi mitozning anafazasidagi tarqalishdan nima bilan farq qiladi?
- Bitta birlamchi spermatositdan nechta voyaga yetgan gameta hosil bo‘ladi? Bitta birlamchi oositdan-chi? Farqning sababini tushuntiring.
- Nima uchun oositning bo‘linishi assimetrik deyiladi? Bu assimetriyaning biologik mohiyati nima?
- Ikkilamchi oosit urug‘lanishgacha meyozning qaysi stadiyasida to‘xtab turadi va uning tugallanishini qaysi hodisa ishga soladi?
- Meyoz I da gomologik xromosomalarning tarqalmasligi qanday qilib trisomiyaga olib keladi? Mexanizmni tushuntiring.
- Nima uchun ona yoshi ortishi bilan homilada aneuploidiya xavfi ortadi?
- Meyozda genetik xilma-xillikni ta’minlovchi ikkita mexanizmni ko‘rsating va ularning qaysi stadiyalarda amalga oshirishini tushuntiring.
- Spermatogenezning zonalarini va har bir zonadagi hujayralarning mos xromosom/DNK to‘plamini sanab o‘ting.
- Kortikal reaksiya nima va nima uchun u normal urug‘lanish uchun muhim?
Bob AIVITA tomonidan umume’tirof etilgan tibbiy bilimlar asosida, aniq darsliklarni qayta hikoya qilmasdan tayyorlangan. Xato yoki noaniqlik topsangiz — xabar bering; shifokorlar tuzatish taklif qilishi mumkin va u tekshiruvdan so‘ng matnga kiritiladi.