 AIVITA
Гистология, цитология и эмбриология
Глава 4. Клеточный цикл и деление клеток
Автор: AIVITA
Оценка врачей: Врачи ещё не оценивали книгу
ⓘ Информация не заменяет консультацию врача. Диагноз и лечение назначает только врач.
Деление клетки — фундаментальный процесс, обеспечивающий рост организма, восстановление тканей и точную передачу наследственной информации из поколения в поколение. В основе деления лежит строго упорядоченная последовательность событий — клеточный цикл, в ходе которого клетка удваивает свой генетический материал, а затем распределяет его между двумя дочерними клетками. Понимание этих событий необходимо для изучения онкологии, эмбриологии и фармакологии — именно поэтому клеточный цикл занимает центральное место в гистологии первого курса.
1. Клеточный цикл: понятие и общая структура
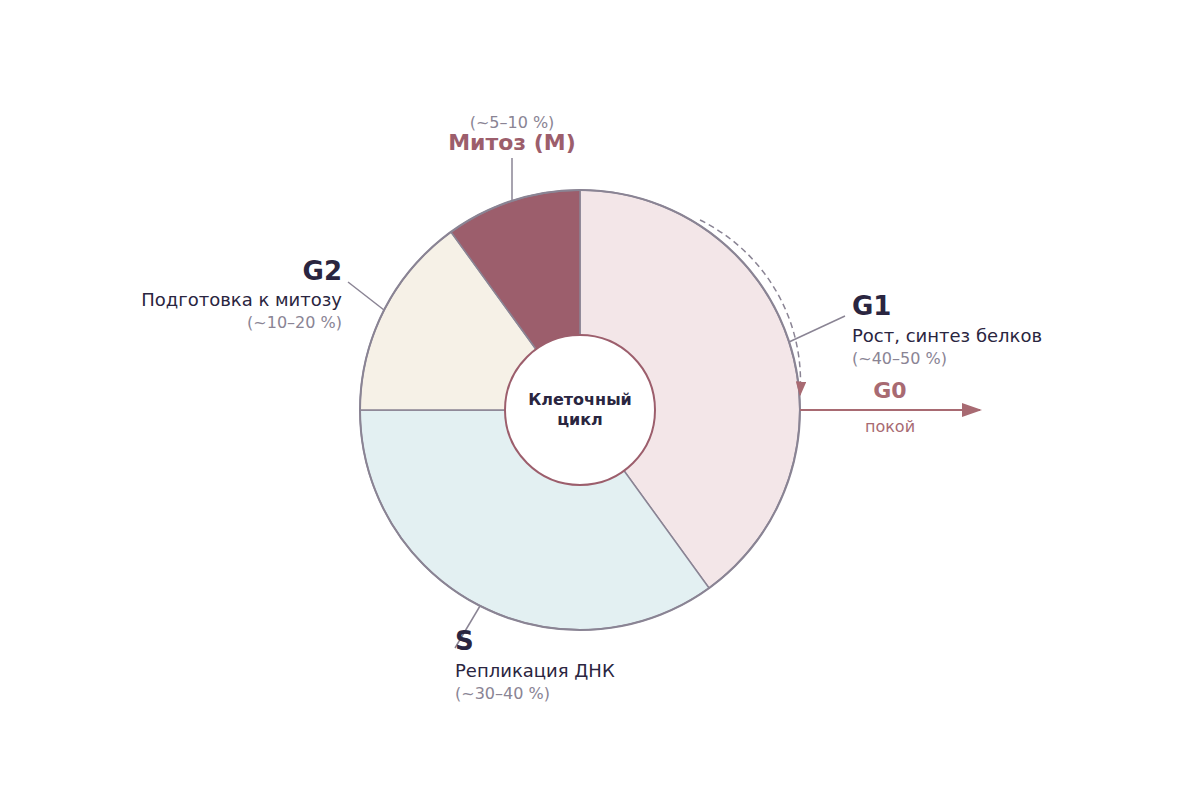
Рис. 1. Клеточный цикл: периоды интерфазы (G1, S, G2) и митоз (M). Стрелка G0 — выход клетки из цикла в состояние покоя. Секторы отражают относительную продолжительность каждого периода. Схема AIVITA.
Клеточный цикл (cyclus cellularis) — упорядоченная последовательность событий, которая начинается в момент образования клетки вследствие деления и заканчивается собственным делением этой клетки или её гибелью. Цикл состоит из двух крупных частей: интерфазы (interphasis) — длительного периода подготовки к делению — и митоза (mitosis) — самого акта деления.
Продолжительность клеточного цикла зависит от типа клетки. У быстро обновляющихся клеток кишечного эпителия он занимает около 16–24 часов; у некоторых клеток зародыша — менее часа. Нервные клетки и поперечнополосатые мышечные волокна в норме не делятся, то есть находятся в состоянии покоя — фазе G0.
Интерфаза
Интерфаза занимает около 90–95 % времени всего цикла. Она подразделяется на три периода.
G1 — первый постмитотический (пресинтетический) период. После завершения предыдущего деления клетка растёт, синтезирует белки, ферменты и органеллы (см. главу 3), восстанавливает нормальный объём цитоплазмы. В этот период клетка «принимает решение» о продолжении цикла: специальная точка проверки (см. раздел 4) оценивает целостность ДНК, наличие ростовых факторов и питательных веществ. Если условия неблагоприятны, клетка выходит из цикла в состояние G0.
S — период синтеза ДНК (synthesis). Происходит репликация — точное копирование всей геномной ДНК. К концу S-периода количество ДНК в клетке удваивается: каждая из 46 хромосом представлена двумя идентичными хроматидами, соединёнными в области центромеры. Одновременно удваиваются центриоли — структуры клеточного центра, от которых зависит правильное расхождение хромосом при делении.
G2 — второй постсинтетический (премитотический) период. Клетка продолжает расти, синтезирует белки веретена деления (tubulin, конденсин, кинезин), проверяет полноту репликации ДНК. Лишь после того как специальная точка проверки удостоверится в целостности всего генома, начинается митоз.
| Период | Основное событие | Относительная продолжительность |
|---|---|---|
| G1 | Рост клетки, синтез белков, принятие решения о продолжении цикла | ~ 40–50 % |
| S | Репликация ДНК, удвоение центриолей | ~ 30–40 % |
| G2 | Синтез белков митоза, финальная проверка ДНК | ~ 10–20 % |
| Митоз (M) | Конденсация хромосом, расхождение, цитокинез | ~ 5–10 % |
2. Митоз
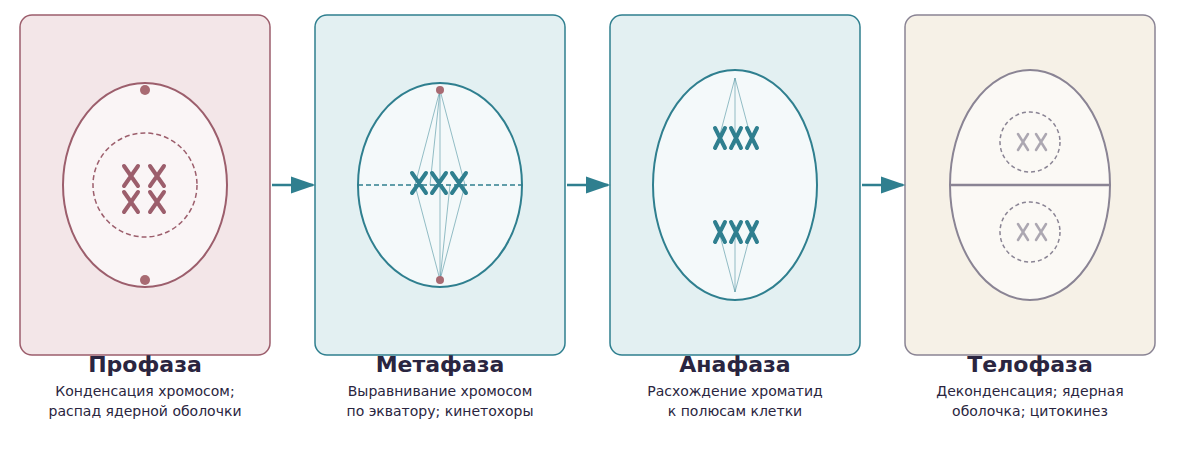
Рис. 2. Фазы митоза: профаза (конденсация хромосом, распад ядерной оболочки), метафаза (хромосомы на экваторе, прикрепление к кинетохорам), анафаза (расхождение сестринских хроматид к полюсам), телофаза (деконденсация, восстановление ядра, цитокинез). Пунктиром показана ядерная оболочка; точки — центриоли. Схема AIVITA.
Митоз (mitosis; от греч. mitos — нить) — непрямое деление соматических клеток, при котором из одной диплоидной клетки (2n) образуются две дочерние клетки с тем же диплоидным набором хромосом (2n). Благодаря митозу генетическая информация во всех клетках тела остаётся идентичной.
Митоз подразделяют на четыре последовательные фазы. Переход между ними непрерывен — деление на фазы условно.
Профаза (prophasis)
Хроматин конденсируется: нити ДНК с белками компактизуются в видимые под микроскопом хромосомы. Каждая хромосома состоит из двух хроматид (chromatidae sororiae), скреплённых в области центромеры (centromera). Центриоли расходятся к полюсам клетки, и между ними начинает формироваться веретено деления (fusus mitoticus) — структура из микротрубочек. Ядрышко исчезает. К концу профазы ядерная оболочка распадается (у клеток животных), и хромосомы оказываются в цитоплазме. Строение ядерной оболочки и ядрышка рассмотрено в главе 3.
Метафаза (metaphasis)
Хромосомы достигают максимальной степени конденсации — именно на этой стадии их легче всего считать и изучать. Поэтому стандартные препараты хромосом (кариотипы) получают именно на метафазных клетках. Нити веретена деления прикрепляются к кинетохорам (kinetochora) — белковым комплексам в центромерной области хромосом. Хромосомы выстраиваются в экваториальной плоскости клетки — метафазной пластинке (plaque metaphasica). В этот момент особая точка проверки удостоверяется, что все кинетохоры правильно прикреплены к нитям веретена.
Анафаза (anaphasis)
Белки, скрепляющие сестринские хроматиды в центромере (когезин), разрушаются. Хроматиды расходятся к противоположным полюсам клетки — с этого момента каждую из них называют дочерней хромосомой. Нити веретена укорачиваются и «тянут» хромосомы к полюсам; одновременно нити в средней части клетки удлиняются, раздвигая полюса дальше друг от друга. К концу анафазы у каждого полюса собирается полный диплоидный набор хромосом.
Телофаза (telophasis)
Хромосомы у полюсов начинают деконденсироваться. Вокруг каждого набора хромосом формируется новая ядерная оболочка, появляется ядрышко, веретено деления разбирается. Одновременно начинается цитокинез (cytokinesis) — деление цитоплазмы: в экваториальной зоне образуется контрактильное кольцо из актина и миозина, которое «перешнуровывает» клетку надвое. В результате образуются две дочерние клетки с диплоидным набором хромосом.
| Фаза | Ключевые события |
|---|---|
| Профаза | Конденсация хромосом; распад ядерной оболочки; формирование веретена деления |
| Метафаза | Выравнивание хромосом по экватору; прикрепление к кинетохорам |
| Анафаза | Расхождение сестринских хроматид к полюсам |
| Телофаза | Деконденсация хромосом; восстановление ядерной оболочки; цитокинез |
Биологический смысл митоза состоит в сохранении постоянства хромосомного набора: все соматические клетки организма несут одинаковую генетическую информацию — необходимое условие скоординированной работы тканей и органов.
3. Мейоз
Мейоз (meiosis; от греч. meiosis — уменьшение) — особое деление клеток-предшественников половых клеток, в результате которого из одной диплоидной клетки (2n) образуются четыре гаплоидные клетки (n) — с вдвое меньшим набором хромосом. Образующиеся клетки — гаметы (gametae): у человека это сперматозоиды и яйцеклетки. Каждая гамета несёт по одной хромосоме из каждой гомологичной пары; при оплодотворении диплоидный набор восстанавливается. Гаметогенез и оплодотворение подробно рассмотрены в главе 5.
Мейоз состоит из двух последовательных делений: мейоза I (редукционного) и мейоза II (эквационного). Между ними нет полноценной интерфазы — ДНК не удваивается.
Мейоз I (редукционное деление)
Профаза I — самая длительная и сложная фаза мейоза. Она подразделяется на пять стадий.
- Лептотена (leptotene): хромосомы начинают конденсироваться.
- Зиготена (zygotene): гомологичные хромосомы сближаются и конъюгируют по всей длине — этот процесс называется синапсисом (synapsis). Образуется структура синаптонемальный комплекс (complexus synaptonemal), «застёгивающая» гомологи вместе.
- Пахитена (pachytene): гомологи плотно соединены. Происходит кроссинговер (crossing over) — обмен участками хроматид между гомологичными хромосомами. Это главный механизм рекомбинации — источника генетического разнообразия потомков.
- Диплотена (diplotene): синаптонемальный комплекс разбирается, гомологи начинают расходиться, но удерживаются в точках кроссинговера — хиазмах (chiasmata).
- Диакинез (diakinesis): хромосомы максимально конденсируются, хиазмы смещаются к концам хромосом, ядерная оболочка распадается.
Метафаза I: бивалент (пара гомологичных хромосом) выстраивается по экватору. Нити веретена прикрепляются к кинетохорам каждой из двух хромосом бивалента. Случайная ориентация биваленты — важный источник изменчивости.
Анафаза I: к полюсам расходятся не хроматиды, а целые гомологичные хромосомы. У каждого полюса оказывается гаплоидный набор (n), но каждая хромосома по-прежнему состоит из двух хроматид.
Телофаза I и цитокинез: образуются две клетки с гаплоидным набором (n, 2с — то есть n хромосом, каждая из двух хроматид). Содержание ДНК уменьшается вдвое.
Мейоз II (эквационное деление)
По механизму мейоз II напоминает митоз, но начинается с гаплоидной клетки. Сестринские хроматиды расходятся к полюсам. В результате из каждой клетки после мейоза I образуются ещё две клетки — итого четыре гаплоидных клетки (n, 1с). Генетический состав всех четырёх различен благодаря кроссинговеру и случайной ориентации хромосом в мейозе I.
| Показатель | Митоз | Мейоз |
|---|---|---|
| Тип клетки | Соматические (2n) | Половые предшественники (2n) |
| Число делений | Одно | Два (I и II) |
| Результат | 2 клетки, 2n | 4 клетки, n |
| Кроссинговер | Не происходит | В профазе I |
| Биологическая роль | Рост, регенерация тканей | Образование гамет; источник изменчивости |
4. Регуляция клеточного цикла
Клеточный цикл регулируется точной системой белков, которая обеспечивает правильный порядок событий и предотвращает деление клеток с повреждённым геномом. Ключевые участники этой системы — циклины (cyclini) и циклинзависимые киназы (CDK, kinasae cyclino-dependentes).
Циклины и CDK
CDK — ферменты, которые фосфорилируют (тем самым активируют или инактивируют) белки-мишени, управляющие переходами между фазами цикла. Однако CDK активны только в комплексе с циклином. Уровень циклинов закономерно нарастает и падает в определённые моменты цикла:
- Циклин D накапливается в G1 при стимуляции ростовыми факторами: комплекс CDK4/6–циклин D фосфорилирует белок Rb, открывая путь в S-фазу.
- Циклин E характерен для перехода G1→S.
- Циклин A участвует в S-фазе и G2.
- Циклин B («митотический циклин») нарастает в G2 и запускает вхождение в митоз: комплекс CDK1–циклин B (называемый M-фазным промотором, MPF) фосфорилирует белки ядерной оболочки, конденсин и другие мишени, обеспечивая начало профазы. В анафазе циклин B резко разрушается — это запускает выход из митоза.
Точки проверки (checkpoints)
Точки проверки — контрольные механизмы, останавливающие цикл при обнаружении нарушений:
- Точка G1/S (ограничительная точка, R-point): оценивается достаточность ростовых факторов, отсутствие повреждений ДНК, нормальный размер клетки. Главный «привратник» — белок Rb (retinoblastoma protein): в нефосфорилированном состоянии он блокирует транскрипционный фактор E2F, необходимый для перехода в S-фазу.
- Точка внутри S-фазы: обнаруживает однонитевые разрывы ДНК, возникающие при репликации.
- Точка G2/M: проверяет полноту репликации и целостность хромосом перед входом в митоз.
- Точка сборки веретена (spindle assembly checkpoint, SAC): блокирует анафазу до тех пор, пока все кинетохоры не прикреплены к нитям веретена. Это предотвращает неравное расхождение хромосом.
Центральный регулятор точек проверки — белок p53: он активируется при повреждении ДНК, усиливает синтез ингибитора CDK (p21) и останавливает цикл. Если повреждение неустранимо, p53 запускает апоптоз (см. раздел 5).
Нарушения регуляции цикла
Мутации в генах, кодирующих циклины, CDK, Rb и p53, встречаются в большинстве злокачественных опухолей:
- потеря функции Rb снимает ограничительную точку G1/S, и клетка делится без внешних сигналов;
- мутация TP53 (наиболее частая мутация при злокачественных опухолях человека) лишает клетку механизма остановки при повреждении ДНК — и накопившиеся мутации не устраняются;
- амплификация или гиперэкспрессия циклина D встречается при раке молочной железы, лёгкого и ряде других опухолей.
5. Программируемая гибель клетки — апоптоз
Апоптоз (apoptosis; от греч. — опадание листьев) — программируемая гибель клетки, генетически заложенный механизм самоуничтожения, необходимый организму. Апоптоз — не аварийная смерть, а упорядоченный процесс: клетка разбирается изнутри без повреждения соседних клеток и без воспалительной реакции.
Признаки апоптоза: конденсация и фрагментация ядра, сморщивание клетки, образование апоптотических телец, которые фагоцитируются макрофагами. ДНК нарезается специальными ферментами — каспазами (caspasae) — на фрагменты стандартного размера.
Апоптоз необходим:
- при эмбриональном развитии — для формирования пальцев кисти и стопы, устранения временных структур (см. главу 6);
- для контроля качества клеток иммунной системы;
- для устранения клеток с повреждённой ДНК (нарушение этого механизма — основа онкогенеза).
Некроз (necrosis) — патологическая гибель клетки вследствие повреждающего воздействия (ишемия, яды, механическая травма). В отличие от апоптоза, некроз сопровождается разрушением плазматической мембраны (см. главу 2) и выходом содержимого клетки во внеклеточное пространство — что запускает воспалительную реакцию.
6. Клиническое значение
Онкология. Злокачественная опухоль — клональная популяция клеток, утративших нормальный контроль клеточного цикла. Мутации в генах-онкосупрессорах (RB1, TP53, BRCA1/2) и протоонкогенах (KRAS, MYC, ERBB2) снимают тормоза деления и подавляют апоптоз. Результат — неограниченная пролиферация.
Противоопухолевая терапия. Многие химиотерапевтические препараты направлены на конкретные фазы цикла или его регуляторные белки:
- препараты, нарушающие полимеризацию тубулина (алкалоиды барвинка — Vinca), блокируют митоз в метафазе, нарушая сборку веретена деления;
- таксаны, напротив, стабилизируют уже собранные микротрубочки и препятствуют расхождению хромосом;
- ингибиторы CDK4/6 (применяемые при раке молочной железы) восстанавливают блок G1/S, блокируя вход в S-фазу.
Лучевая терапия действует преимущественно через повреждение ДНК: клетки с сохранёнными точками проверки останавливаются и подвергаются апоптозу; опухолевые клетки, утратившие p53, останавливаются хуже, но в конечном счёте гибнут из-за катастрофических ошибок при делении.
Анеуплоидия. Ошибки в точке сборки веретена (SAC) могут привести к нерасхождению хромосом (nondisjunction) в мейозе и образованию гамет с лишней или недостающей хромосомой. Слияние такой гаметы с нормальной даёт трисомию или моносомию — частую причину спонтанных абортов, а при жизнеспособности — основу хромосомных болезней (подробнее — в главе 5).
Регенерация тканей. После повреждения ткани клетки-предшественники выходят из G0 и начинают делиться, восстанавливая утраченные структуры. Эта способность неодинакова у разных тканей: клетки костного мозга, кишечного эпителия и кожи обновляются непрерывно; клетки печени делятся лишь при необходимости; нейроны центральной нервной системы практически не регенерируют.
Вопросы для самопроверки
- Из каких периодов состоит интерфаза и что происходит в каждом из них?
- Почему репликация ДНК должна завершиться до начала митоза?
- Опишите последовательность фаз митоза и укажите, что происходит с ядерной оболочкой и веретеном деления.
- В чём принципиальное отличие митоза от мейоза по набору хромосом в дочерних клетках?
- Что такое синапсис и кроссинговер? На каких стадиях профазы I они происходят и какое биологическое значение имеют?
- Объясните роль циклинов и CDK в регуляции клеточного цикла. Почему разрушение циклина B в анафазе важно для завершения митоза?
- Что такое «точка проверки» клеточного цикла? Назовите четыре основные точки и объясните, что каждая из них контролирует.
- Какова роль белков Rb и p53 в контроле клеточного цикла?
- Чем апоптоз отличается от некроза по механизму и последствиям для окружающих тканей?
- Объясните, как инактивирующая мутация гена RB1 может привести к злокачественной опухоли.
- Нерасхождение хромосом при мейозе: в каком делении оно происходит и к каким последствиям может привести?
- На какой фазе митоза действуют таксаны и почему их действие останавливает деление клетки?
Глава подготовлена AIVITA по общепризнанным медицинским знаниям, без пересказа конкретных учебников. Если вы нашли ошибку или неточность — сообщите о ней; врачи могут предложить исправление, и после проверки оно будет внесено в текст.