 AIVITA
Гистология, цитология и эмбриология
Глава 3. Органеллы клетки. Ядро. Включения
Автор: AIVITA
Оценка врачей: Врачи ещё не оценивали книгу
ⓘ Информация не заменяет консультацию врача. Диагноз и лечение назначает только врач.
Клетка непрерывно работает: синтезирует белки, добывает энергию, обезвреживает чужеродные молекулы, хранит и передаёт наследственную информацию. Всё это обеспечивается специализированными структурами — органеллами и включениями, которые рассматриваются в этой главе. Строение клеточной мембраны и основные свойства цитоплазмы описаны в главе 2; клеточный цикл и деление — в главе 4.
1. Органеллы: понятие и классификация
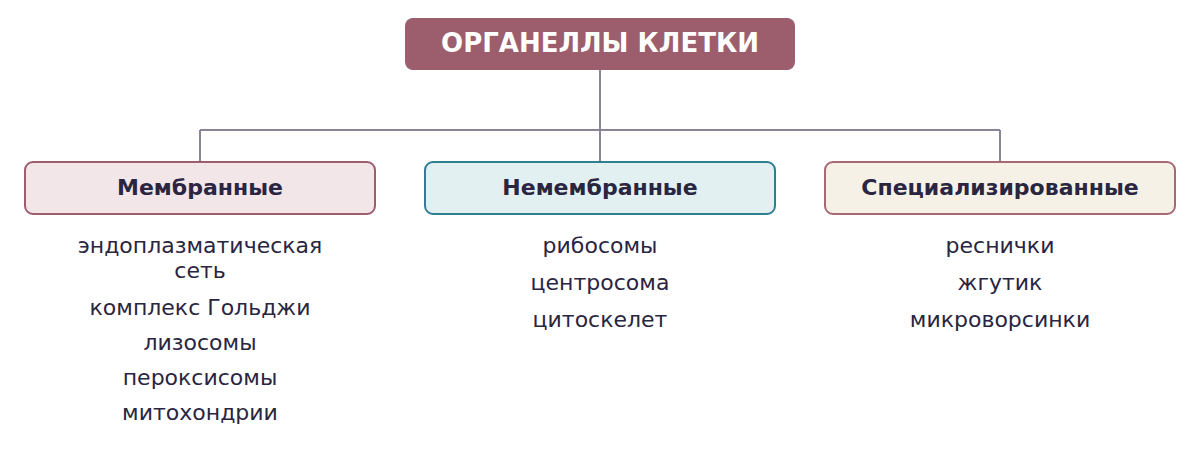
Рис. 1. Классификация органелл клетки по принципу строения Схема AIVITA.
Органелла (organella, от лат. organum — орган) — постоянная, морфологически обособленная структура клетки, выполняющая определённую функцию. В отличие от включений, органелла присутствует в клетке постоянно и воспроизводится при каждом делении.
По принципу строения органеллы делят на две группы.
Мембранные органеллы ограничены одной или двумя биологическими мембранами: эндоплазматическая сеть, комплекс Гольджи, лизосомы, пероксисомы, митохондрии. Мембранная оболочка создаёт замкнутое пространство с собственным химическим микроокружением — pH, концентрацией ионов и субстратов, — необходимым для работы ферментов.
Немембранные органеллы не имеют собственной мембранной оболочки: рибосомы, центросома, цитоскелет. Они построены из белков и нуклеиновых кислот и выполняют структурно-механические или каталитические функции.
Дополнительно выделяют специализированные органеллы — структуры, присутствующие не во всех клетках, а только там, где нужна особая работа: реснички (cilia), жгутик (flagellum), микроворсинки (microvilli), миофибриллы (в мышечных клетках; см. главу 11), нейрофибриллы (в нейронах; см. главу 12).
2. Мембранные органеллы
2.1. Эндоплазматическая сеть
Эндоплазматическая сеть (reticulum endoplasmaticum, ЭПС) — система плоских цистерн, трубочек и пузырьков, пронизывающая всю цитоплазму. Её мембраны составляют около половины всей мембранной поверхности клетки и непосредственно связаны с наружной мембраной ядра.
Различают два функционально различных вида ЭПС.
Гранулярная (шероховатая) ЭПС — на наружной поверхности её мембран расположены рибосомы, придающие ей зернистый вид. Здесь синтезируются белки, предназначенные для секреции (экспорта из клетки), встраивания в мембрану или транспорта в лизосомы. Синтезированный полипептид поступает в просвет цистерн, где проходит первичную модификацию — гликозилирование и фолдинг (укладку в правильную пространственную конфигурацию). Неправильно сложенные белки задерживаются и расщепляются. Гранулярная ЭПС хорошо развита в железистых клетках, гепатоцитах, плазматических клетках, синтезирующих антитела.
Агранулярная (гладкая) ЭПС — рибосом нет, мембрана выглядит гладкой. В ней синтезируются липиды и стероидные гормоны, обезвреживаются ксенобиотики — лекарственные препараты и токсины — с участием цитохрома P450, депонируется ионизированный кальций. В мышечных клетках этот отдел ЭПС называют саркоплазматическим ретикулумом (reticulum sarcoplasmaticum): быстрое высвобождение Ca²⁺ из него запускает сокращение. Гладкая ЭПС преобладает в клетках коры надпочечников, семенников, клетках Лейдига и в гепатоцитах.
2.2. Комплекс Гольджи
Комплекс Гольджи (complexus Golgii) — стопка плоских мембранных цистерн (обычно от 4 до 8), окружённых многочисленными пузырьками-везикулами. Он расположен вблизи ядра, нередко рядом с центросомой.
В цистернах происходит сортировка, модификация и упаковка молекул, поступающих из ЭПС: белки дополнительно гликозилируются, сульфатируются, фосфорилируются. В стопке различают цис-поверхность (обращённую к ЭПС, принимающую) и транс-поверхность (отправляющую). Готовые продукты отшнуровываются в транспортных везикулах и направляются:
- на плазматическую мембрану (секреторный путь и экзоцитоз);
- в лизосомы (несут специальную метку — маннозо-6-фосфат);
- во внеклеточную среду конститутивно или по сигналу (регулируемая секреция).
В клетках с высокой секреторной активностью — ацинозных клетках поджелудочной железы, бокаловидных клетках кишечника — комплекс Гольджи очень хорошо развит.
2.3. Лизосомы
Лизосомы (lysosomata) — одномембранные пузырьки диаметром в среднем около 0,2–0,5 мкм, содержащие в просвете около 60 видов гидролитических ферментов (кислые гидролазы). Оптимум их активности — pH около 4,5–5,0, который создаётся протонной помпой в мембране лизосомы.
Лизосомы расщепляют:
- материал, захваченный клеткой извне: бактерии, отмершие клетки, крупные молекулы — гетерофагия (heterophagia);
- собственные изношенные органеллы — аутофагия (autophagia): «изношенная» органелла упаковывается в мембрану (аутофагосома), которая затем сливается с лизосомой.
Собственная мембрана лизосомы не переваривается благодаря особым мембранным гликопротеинам, обращённым в просвет и экранирующим мембрану от ферментов.
Гетерофагия необходима нейтрофилам и макрофагам — ключевым клеткам иммунной защиты. Аутофагия поддерживает клеточный гомеостаз, обновляя «изношенные» белки и органеллы.
2.4. Пероксисомы
Пероксисомы (peroxysomata) — одномембранные пузырьки диаметром в среднем около 0,1–1 мкм. В их матриксе сосредоточены оксидазы и каталазы. Оксидазы расщепляют жирные кислоты и аминокислоты, образуя при этом перекись водорода (H₂O₂). Каталаза немедленно нейтрализует H₂O₂: разлагает до воды и кислорода или использует для окисления алкоголя и фенолов. Таким образом, пероксисомы — важный детоксикационный аппарат клетки, работающий в тесной связи с гладкой ЭПС. Пероксисомы многочисленны в гепатоцитах и клетках почечных канальцев.
2.5. Митохондрии
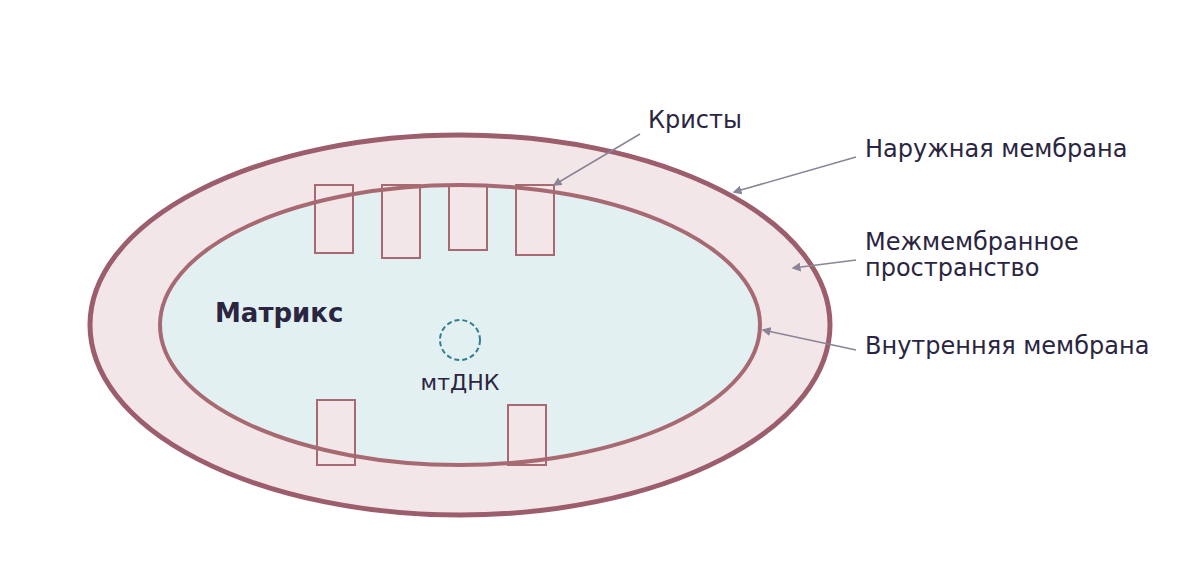
Рис. 2. Строение митохондрии: поперечный разрез Схема AIVITA.
Митохондрии (mitochondria) — двумембранные органеллы с собственной ДНК и собственными рибосомами. Это главная «энергетическая станция» клетки: здесь синтезируется около 90 % клеточного АТФ путём окислительного фосфорилирования.
Строение митохондрий:
- наружная мембрана (membrana externa) — гладкая, проницаемая для небольших молекул;
- внутренняя мембрана (membrana interna) — образует глубокие складки, кристы (cristae), резко увеличивающие её поверхность; несёт АТФ-синтазы и компоненты дыхательной цепи;
- матрикс (matrix) — полужидкое содержимое внутри внутренней мембраны; содержит митохондриальную ДНК (кольцевую, как у прокариот), рибосомы и ферменты цикла Кребса.
Митохондрии способны делиться независимо от деления клетки. Их количество коррелирует с энергетическими потребностями: в кардиомиоцитах и поперечнополосатых мышечных волокнах митохондрий особенно много; в зрелых эритроцитах и тромбоцитах они отсутствуют или единичны.
Митохондриальная ДНК наследуется исключительно по материнской линии, что используется в генетических исследованиях и судебной медицине.
3. Немембранные органеллы
3.1. Рибосомы
Рибосомы (ribosomata) — частицы диаметром около 20–25 нм, построенные из рибосомной РНК (рРНК) и белков. Каждая рибосома состоит из двух субъединиц — большой и малой. Рибосомы синтезируют все белки клетки: читают информацию с матричной РНК (мРНК) и собирают аминокислотную цепочку.
Часть рибосом расположена свободно в гиалоплазме (синтезируют белки для внутреннего использования), другая часть прикреплена к мембранам ЭПС. Несколько рибосом, одновременно транслирующих одну мРНК, образуют полисому (полирибосому) — функциональную единицу трансляции.
Рибосомы митохондрий (меньшего размера, 55S) по структуре близки к бактериальным 70S-рибосомам и отличаются от цитоплазматических 80S-рибосом. Это практически важно: антибиотики, подавляющие прокариотические рибосомы (аминогликозиды, хлорамфеникол, тетрациклины), в высоких дозах могут частично подавлять митохондриальные рибосомы.
3.2. Центросома
Центросома (centrosoma), или клеточный центр, образует полюсы митотического веретена при делении клетки (см. главу 4). Состоит из двух центриолей (centrioli) — коротких цилиндров, стенка которых образована девятью триплетами микротрубочек (расположение 9+0). Пара центриолей погружена в уплотнённый перицентриолярный материал, от которого в интерфазе отходят микротрубочки цитоскелета.
Центриоли также служат базальными тельцами (corpuscula basalia) для ресничек и жгутиков.
3.3. Цитоскелет
Цитоскелет (cytosceletos) — динамическая белковая сеть, пронизывающая всю цитоплазму. Он поддерживает форму клетки, обеспечивает внутриклеточный транспорт и движение клетки. Выделяют три компонента:
| Компонент | Диаметр | Белки | Основные функции |
|---|---|---|---|
| Микрофиламенты (microfilamenta) | около 7 нм | актин | движение клетки, цитокинез, проведение сигнала |
| Промежуточные филаменты (filamenta intermedia) | около 10 нм | кератины, десмин, виментин, ламины, нейрофиламенты | механическая прочность клетки и ядра |
| Микротрубочки (microtubuli) | около 25 нм | тубулин | деление клетки, транспорт везикул, основа ресничек и жгутика |
Микрофиламенты и микротрубочки полимеризуются и деполимеризуются быстро, что позволяет клетке динамически менять форму и перемещаться. Промежуточные филаменты стабильнее и определяют механическую прочность разных типов клеток: кератины — в эпителии, виментин — в фибробластах и клетках мезенхимы, десмин — в мышечных клетках, нейрофиламенты — в нейронах, ламины — в ядерной оболочке.
4. Специализированные органеллы
Реснички (cilia) и жгутик (flagellum) — подвижные выросты плазматической мембраны, основу которых составляет аксонема (axonema) — стержень из девяти пар периферических микротрубочек и одной центральной пары (расположение 9+2). Пары соединены динеиновыми «руками»; скольжение пар относительно друг друга, обеспечиваемое динеином-АТФазой, создаёт изгибание всего выроста.
- Реснички характерны для клеток мерцательного эпителия дыхательных путей и маточных труб: их синхронное биение перемещает слизь и поддерживает мукоцилиарный клиренс.
- Жгутик единственный у сперматозоида — обеспечивает его поступательное движение.
Микроворсинки (microvilli) — неподвижные пальцеобразные выросты мембраны, содержащие пучок актиновых микрофиламентов. Они резко увеличивают поверхность всасывания. Совокупность микроворсинок на апикальной поверхности энтероцитов образует щёточную кайму (limbus penicillatus); похожие, но более длинные выросты клеток эпидидимиса называют стереоцилиями (stereocilia) — они неподвижны и участвуют в всасывании.
5. Ядро клетки
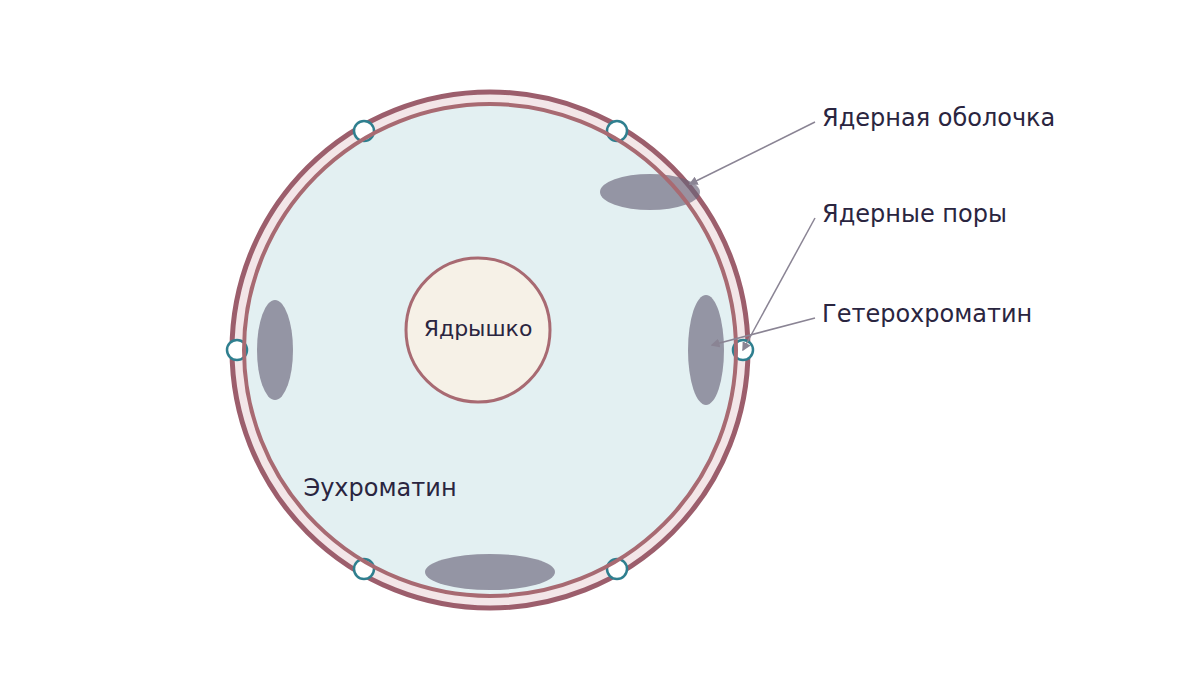
Рис. 3. Схема строения ядра клетки Схема AIVITA.
Ядро (nucleus) — центральный компартмент клетки, содержащий геном. Оно управляет синтезом всех белков клетки через транскрипцию и хранит наследственную информацию в виде ДНК. Большинство клеток человека содержат одно ядро; клетки поперечнополосатой мышечной ткани (миосимпласт) многоядерны, тогда как зрелые эритроциты ядра лишены.
Размеры ядра — в среднем около 5–10 мкм; форма зависит от типа клетки: округлая (нейроны, гепатоциты), бобовидная (лимфоциты), многолопастная или сегментированная (нейтрофилы).
5.1. Ядерная оболочка
Ядерная оболочка (membrana nuclearis) состоит из двух параллельных мембран — наружной и внутренней. Пространство между ними, перинуклеарная цистерна (cisterna perinuclearis), сообщается с просветом ЭПС. Наружная мембрана несёт рибосомы так же, как мембраны гранулярной ЭПС.
В ядерной оболочке равномерно расположены ядерные поры (pori nucleares) — сложные белковые комплексы диаметром около 120 нм. Через поры происходит двунаправленный обмен:
- из ядра выходят: мРНК, рРНК, субъединицы рибосом;
- в ядро поступают: белки-регуляторы транскрипции, гистоны, ферменты репликации, нуклеотиды.
Небольшие молекулы диффундируют свободно; крупные проходят через поры активно — с затратой энергии и участием транспортных белков (importinov, exportinov). Количество пор в ядре зависит от метаболической активности клетки: в активно синтезирующих клетках их больше.
5.2. Хроматин и ядерный матрикс
Хроматин (chromatinum) — комплекс ДНК с белками, прежде всего с гистонами, обнаруживаемый в ядре в интерфазе. В зависимости от степени упаковки различают два состояния:
- Эухроматин (euchromatinum) — рыхло упакованная, транскрипционно активная ДНК. При световой микроскопии окрашивается слабо; содержит активно читаемые гены.
- Гетерохроматин (heterochromatinum) — плотно упакованная, транскрипционно инактивная ДНК. Прилежит к внутренней поверхности ядерной оболочки и выглядит как тёмные, хорошо окрашивающиеся глыбки. Классический пример — тельце Барра (corpusculum Barri): у женщин одна из двух X-хромосом в каждой соматической клетке инактивирована и конденсирована в тельце Барра, видимое в виде тёмного пятнышка у ядерной оболочки. Инактивация X-хромосомы — случайный процесс (лионизация); у разных клеток активна либо материнская, либо отцовская X-хромосома.
Единица упаковки хроматина — нуклеосома (nucleosoma): отрезок ДНК (около 146 пар нуклеотидов), обмотанный вокруг октамера гистонов. Нуклеосомы складываются в более компактные соленоидные и петлевые структуры, которые в митозе конденсируются в хромосомы (см. главу 4).
Ядерный матрикс (нуклеоскелет) — белковая сеть внутри ядра, поддерживающая его форму и пространственную организацию хроматина. Ламины — промежуточные филаменты, входящие в состав матрикса и выстилающие ядерную оболочку изнутри, — необходимы для её целостности.
5.3. Ядрышко
Ядрышко (nucleolus) — округлое, лишённое собственной мембраны образование внутри ядра. Это место синтеза рибосомной РНК и сборки субъединиц рибосом. Гены рРНК расположены на пяти парах хромосом (13, 14, 15, 21, 22) и собираются в ядрышковые организаторы.
В ядрышке различают три зоны:
- фибриллярный центр (centrum fibrillare) — содержит гены рРНК;
- плотный фибриллярный компонент — зона активной транскрипции рРНК;
- гранулярный компонент (componentum granulare) — созревающие субъединицы рибосом.
Клетки с высокой белково-синтетической активностью — быстро делящиеся опухолевые клетки, железистые клетки — имеют крупные ядрышки. В митозе ядрышко исчезает и восстанавливается в телофазе.
6. Включения клетки
Включения (inclusiones) — непостоянные компоненты цитоплазмы: в отличие от органелл, они могут присутствовать или отсутствовать в зависимости от функционального состояния клетки. Включения не имеют собственной мембраны (или ограничены мембраной ЭПС).
| Тип включений | Состав | Примеры клеток и веществ |
|---|---|---|
| Трофические (питательные) | жиры, гликоген, белковые гранулы | жировые капли в адипоцитах и гепатоцитах; гранулы гликогена в гепатоцитах и кардиомиоцитах |
| Секреторные | гранулы секрета | гранулы зимогена в ацинозных клетках поджелудочной железы; гранулы инсулина в β-клетках |
| Экскреторные | продукты обмена | гранулы мочевой кислоты, желчные пигменты в гепатоцитах |
| Пигментные | пигменты | меланин в меланоцитах; гемоглобин в эритроцитах; липофусцин в нейронах и кардиомиоцитах |
Жировые включения накапливаются в норме в адипоцитах и лактирующих клетках молочной железы, а при патологии — жировой дистрофии гепатоцитов при алкоголизме, ожирении и сахарном диабете.
Гликоген быстро мобилизуется при снижении глюкозы в крови. Запасы гликогена в гепатоцитах составляют в среднем около 100–150 г; в скелетных мышцах суммарно ещё больше.
Липофусцин («пигмент изнашивания») — нерасщеплённые остатки перекисного окисления, желтовато-коричневые гранулы, накапливающиеся в лизосомах с возрастом. Высокое содержание липофусцина в нейронах и кардиомиоцитах рассматривают как маркер клеточного «старения».
Клиническое значение
Митохондриальные болезни. Мутации в митохондриальной ДНК нарушают окислительное фосфорилирование и проявляются поражением тканей с наибольшим энергопотреблением — сердечной и скелетных мышц, нейронов, сетчатки. Митохондриальные болезни передаются исключительно по материнской линии, что позволяет отличить их от ядерных генетических болезней.
Лизосомные болезни накопления. Генетический дефект какого-либо лизосомного фермента приводит к накоплению нерасщеплённого субстрата внутри клетки. Примеры: болезнь Гоше (накопление глюкоцереброзида в макрофагах), болезнь Тэя–Сакса (накопление ганглиозида GM2 в нейронах). Для ряда форм разработана ферментозаместительная терапия.
Пероксисомные болезни. Нарушение биогенеза пероксисом (синдром Зеллвегера) или дефект отдельных пероксисомных ферментов (Х-сцепленная адренолейкодистрофия) вызывают накопление очень длинноцепочечных жирных кислот и тяжёлое поражение нервной системы и надпочечников.
Первичная цилиарная дискинезия. Мутации в генах аксонемных белков, особенно динеина, нарушают подвижность ресничек. Следствие — хронические инфекции дыхательных путей (нарушен мукоцилиарный клиренс), бронхоэктазы, мужское бесплодие. При синдроме Картагенера к этому добавляется обратное расположение органов (situs inversus) — пример того, как нормальное определение асимметрии тела у зародыша зависит от движения ресничек (см. главу 6).
Тельце Барра в диагностике. Простой буккальный мазок позволяет обнаружить или исключить наличие тельца Барра, что помогает при диагностике нарушений полового развития (например, синдрома Клайнфельтера, синдрома Тёрнера).
Антибиотики и рибосомы. Аминогликозиды, тетрациклины и хлорамфеникол действуют на бактериальные 70S-рибосомы. В высоких дозах они могут частично нарушать работу митохондриальных 55S-рибосом, что объясняет ото- и нефротоксичность аминогликозидов, а также гематотоксичность хлорамфеникола при длительном применении.
Ядрышко и опухолевые клетки. Увеличение размеров ядрышка — один из морфологических критериев злокачественности опухолей: оно отражает высокую потребность быстро делящихся клеток в рибосомах и белковом синтезе. Это учитывается при гистологическом анализе биоптатов.
Вопросы для самопроверки
- Чем органелла отличается от включения клетки? Приведите пример каждого.
- Перечислите мембранные органеллы и укажите, сколько мембран у каждой из них.
- В чём функциональное различие между гранулярной и агранулярной эндоплазматической сетью?
- Что происходит с белком, синтезированным на рибосомах гранулярной ЭПС, до того как он покинет клетку?
- Объясните, почему мембрана лизосомы не расщепляется её собственными ферментами.
- Почему количество митохондрий в кардиомиоцитах значительно выше, чем в тромбоцитах?
- Что такое эухроматин и гетерохроматин? В чём их функциональное отличие?
- Опишите строение ядрышка и его основную функцию.
- Что такое тельце Барра и как его образование связано с лионизацией?
- Перечислите типы клеточных включений и укажите по одному примеру каждого.
- При каком заболевании нарушается подвижность ресничек? Каковы его клинические проявления?
- Почему митохондриальные болезни передаются только по материнской линии?
Глава подготовлена AIVITA по общепризнанным медицинским знаниям, без пересказа конкретных учебников. Если вы нашли ошибку или неточность — сообщите о ней; врачи могут предложить исправление, и после проверки оно будет внесено в текст.