 AIVITA
7-bob. Genlar ekspressiyasi: transkripsiya, translyatsiya va genetik kod
Muallif: AIVITA
Shifokorlar bahosi: Shifokorlar hali baho bermagan
ⓘ Ma’lumot shifokor maslahatini almashtirmaydi. Tashxis va davolashni faqat shifokor belgilaydi.
Organizmimizning har bir hujayrasi yadrosida bir xil genetik matn mavjud, ammo jigar hujayralari, neyronlar va mushak tolalari o‘zlarining oqsil tarkibi bilan tubdan farq qiladi. Bu farqning sababi — har bir hujayraning qaysi genlarini qachon va qay darajada faollashtirishida yotadi. DNKdagi nukleotidlar ketma-ketligidan ishlayotgan oqsilgacha bo‘lgan yo‘l gen ekspressiyasi (gene expression) deb ataladi: bu ikki bosqichli jarayon — transkripsiya va translyatsiya — hujayraning butun hayotini boshqaradi va har bir hujayra turining o‘ziga xos molekulyar qiyofasini belgilaydi.
1. Genetik ma’lumot oqimi
Molekulyar biologiyaning markaziy dogmasi, Frensis Krik tomonidan 1958-yilda shakllantirilgan, tirik hujayralarda genetik ma’lumotning uzatilish yo‘nalishini tasvirlaydi:
DNK → RNK → Oqsil
Bu shuni anglatadiki, ma’lumot avval DNKdan RNKga o‘tkaziladi (transkripsiya), so‘ngra RNK asosida oqsil sintez qilinadi (translyatsiya). Odatda oqsildan nuklein kislotaga qaytish yo‘li mavjud emas. Istisno sifatida retrovirüslardagi teskari transkripsiya (RNK → DNK) ni keltirish mumkin, ammo inson hujayralari uchun asosiy qoida o‘z kuchida qoladi.
Gen (gene) molekulyar ma’noda — funktsional molekula: ko‘pincha oqsil, ba’zan esa ribosomal yoki transport RNK sintezi uchun ma’lumot saqlovchi DNK bo‘limi. DNKning tuzilishi, nukleotid tarkibi va asosiy RNK turlari 6-bobda batafsil ko‘rib chiqilgan; bu yerda biz bevosita genetik ma’lumotning qanday o‘qilishi va molekulyar mahsulotlarga aylanishi haqida so‘z yuritamiz.
2. Transkripsiya: RNK sintezi
Transkripsiya (lotincha transcriptio — ko‘chirish) — DNKning bir zanjiri matritsasida RNK molekulasini sintez qilish jarayoni. Bu sintezni amalga oshiruvchi ferment — RNK-polimeraza (RNA polymerase). Eukariotlarda transkripsiya hujayra yadrosida boradi.
2.1. Transkripsiya natijasida hosil bo‘ladigan RNK turlari
Turli genlarning transkripsiyasi natijasida bir necha funktsional sinf RNK hosil bo‘ladi.
| RNK turi | Qisqartma | Asosiy vazifasi |
|---|---|---|
| Matritsa (axborot) | iRNK (mRNK) | DNKdan ribosomaga ma’lumot o‘tkazadi |
| Ribosomal | rRNK | ribosomaning strukturaviy va katalitik komponenti |
| Transport | tRNK | translyatsiya davomida aminokislotalarni ribosomaga yetkazadi |
| Kichik yadro | kYaRNK | pRNKning splaysigida ishtirok etadi |
| Mikro-RNK | miRNK | iRNK barqarorligini va translyatsiyani boshqaradi |
Oqsil sintezi uchun uchta sinf hal qiluvchi rol o‘ynaydi: iRNK sintez dasturini olib yuradi, rRNK ribosoma tuzilishini ta’minlaydi, tRNK esa molekulyar tarjimon vazifasini bajaradi.
2.2. Transkripsiya mexanizmi
Transkripsiya uch bosqichni o‘z ichiga oladi.
Initsiatsiya. Oqsil kodlovchi genlar uchun RNK-polimeraza II yordamchi oqsillar — transkripsiya omillari (transcription factors) — bilan birlikda promotor (promoter) deb ataladigan regulyator hududga bog‘lanadi. Promotor transkripsiya boshlanish nuqtasidan yuqorida joylashgan bo‘lib, konservativ nukleotid ketma-ketliklarini (ko‘p genlarda TATA-qutisi) o‘z ichiga oladi. Initsiatsiya kompleksi yig‘ilgach, DNK ikki zanjiri mahalliy ravishda ochiladi va RNK sintezi boshlanadi.
Elongatsiya. RNK-polimeraza matritsa DNK zanjiri bo‘ylab 3'→5' yo‘nalishida harakatlana turib, komplementarlik prinsipi asosida (A—U, G—Ts) ribonukleotidlarni birma-bir qo‘shib RNK zanjirini 5'→3' yo‘nalishida uzaytiradi. Yangi sintezlangan RNK zanjiri — birlamchi transkript, ya’ni pRNK (pre-mRNA) — genning ham kodlovchi, ham kodlamovchi bo‘limlarining nusxasini o‘z ichiga oladi.
Terminatsiya. RNK-polimeraza terminator (terminator) deb ataladigan spesifik DNK ketma-ketligiga yetganda transkripsiya to‘xtaydi va RNK molekulasi ozod bo‘ladi.
2.3. Eukariotlarda pRNKning protsessigi
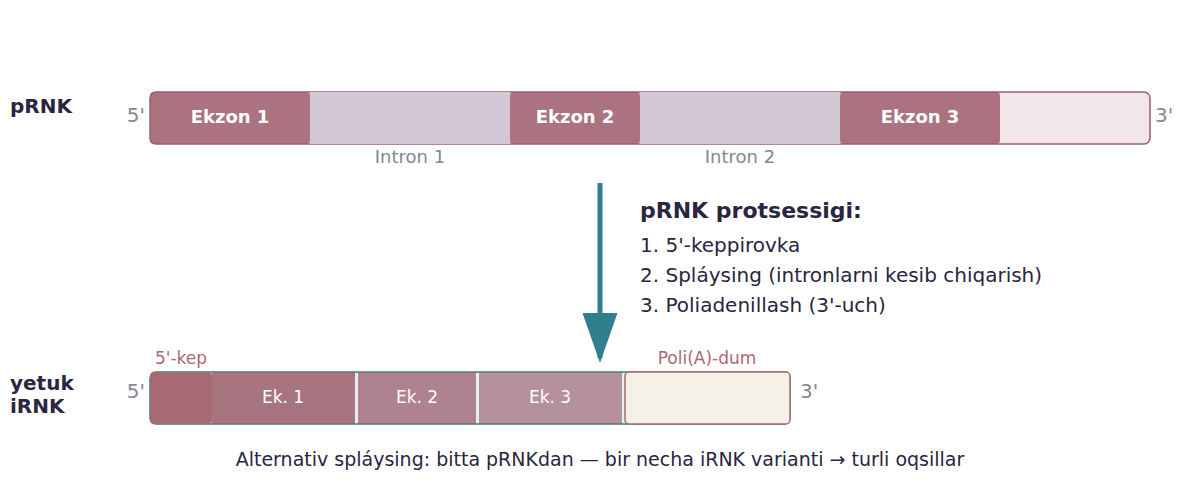
2-rasm. Eukariotlarda pRNK protsessigi: (1) 5′-kep biriktirilishi, (2) spláysing — intronlar kesib chiqariladi, ekzonlar ulanadi, (3) poli(A)-dum qo'shiladi. Alternativ spláysing bir gendan bir necha oqsil sintez qilish imkonini beradi. AIVITA sxemasi.
Eukariotlarda birlamchi transkript sitoplazmaga chiqishdan oldin yadro ichida bir necha majburiy o‘zgarishlarga uchraydi. Bu bosqich protsessing (RNA processing) deb ataladi.
1. Keppirovka (5'-kep). Transkripsiya davomidayoq pRNKning 5'-uchiga modifitsiyalangan nukleotid — 7-metilguanozin — biriktiriladi. Kep (cap) RNK molekulasini nukleazalardan himoya qiladi va ribosomaning kichik kenja birligiga bog‘lanish uchun signal bo‘lib xizmat qiladi.
2. Poliadenillash. Maxsus fermentlar pRNKning 3'-uchiga bir necha yuz adenozin qoldig‘idan iborat zanjir — poli(A)-dum (poly(A) tail) — qo‘shadi. Bu iRNKni barqarorlashtiradi va uning yadradan sitoplazmaga eksportini osonlashtiradi.
3. Spláysing (splicing). Birlamchi transkriptdan kodlamovchi kiritma ketma-ketliklar — intronlar (intron) — kesib chiqariladi, kodlovchi bo‘limlar esa — ekzonlar (exon) — bir-biriga aniq ulashtiriladi. Bu yuqori aniqlikdagi reaktsiyani ribonukleoproteid kompleks — splaysosoma (spliceosome) — kataliz qiladi.
Alternativ spláysing (alternative splicing) tufayli bitta birlamchi transkriptdan turli ekzon kombinatsiyalarini o‘z ichiga olgan bir necha yetuk iRNK hosil bo‘lishi mumkin. Bu bir genning bir necha o‘zaro bog‘liq, ammo vazifasi jihatidan farqlanuvchi oqsillarni kodlash imkonini beradi — bu mexanizm inson oqsillarining soni (~100 000) genlar sonidan (~20 000) sezilarli darajada ko‘p bo‘lishini tushuntirishga yordam beradi.
Protsessigdan o‘tgan yetuk iRNK yadro qobig‘idagi teshikchalar orqali sitoplazmaga o‘tadi, u yerda ribosomalar uni o‘qiydi.
3. Genetik kod
Genetik kod (genetic code) — iRNKdagi nukleotidlar ketma-ketligi va oqsildagi aminokislotalar ketma-ketligi o‘rtasidagi mos kelish tizimi. Kodning asosiy birligi — kodon (codon) — iRNKning uchta ketma-ket nukleotididan iborat triplet.
3.1. Kodonlar va kod jadvali
iRNK molekulasida 4³ = 64 kodon (to‘rt nukleotidning uchtali barcha kombinatsiyalari) mavjud bo‘lishi mumkin. Ulardan:
- 61 kodon aminokislotalarni kodlaydi;
- 3 kodon — stop-kodonlar (stop codon, nonsens-kodonlar): UAA, UAG, UGA — hech qanday aminokislotani kodlamaydi, ribosomaga translyatsiyaning tugaganligi haqida signal beradi.
Polipeptid zanjirining birinchi kodoni — start-kodon AUG bo‘lib, u metionin (methionine) aminokislotasini kodlaydi. AUG o‘qish ramkasini belgilaydi.
20 aminokislota 61 kodon tomonidan kodlanganligidan, ko‘pgina aminokislotalar bir necha kodonga ega: masalan, leytsin oltita, metionin va triptofan esa bittadan kodon bilan kodlanadi. Bu xususiyat kodning buziluvchanligi (ziyodligi) (degeneracy) deb ataladi.
3.2. Genetik kodning xossalari
| Xossa | Mohiyati |
|---|---|
| Tripletlilik | Bitta aminokislota uch nukleotid (kodon) orqali aniqlanadi |
| Bir qiymatlilik (spetsifik) | Har bir kodon faqat bitta aminokislotaga (yoki stop-signalga) mos keladi |
| Buziluvchanligi (ziyodligi) | Ko‘pgina aminokislotalar bir necha kodon bilan kodlanadi (1 dan 6 gacha) |
| Uzluksizligi | Kodonlar ajratuvchilarsiz ketma-ket o‘qiladi |
| Chatishtirmaslik | Har bir nukleotid faqat bitta kodonga kiradi |
| Universalligi | Kod barcha tirik organizmlarda amalda bir xil |
Genetik kodning universalligi Yerdagi barcha hayotning umumiy kelib chiqishi haqidagi eng muhim dalillardan biridir. Mitoxondriyalarda va bir qator mikroorganizmlarda kichik istisnolar ma’lum, ammo ular umumiy tamoyilni buzmaydi.
Kodning buziluvchanligining biologik ahamiyati bor: sinonim kodonlar odatda faqat uchinchi nukleotidi bilan farqlanadi. Bu kodni sukunatli mutatsiyalarga (silent mutation) — aminokislotani o‘zgartirmaydigan almashinuvlarga — chidamli qiladi (batafsil — 10-bobda).
4. Translyatsiya: oqsil sintezi
Translyatsiya (lotincha translatio — o‘tkazish, tarjima) — iRNKda kodlangan ma’lumot asosida ribosomada polipeptid zanjirini sintez qilish. Translyatsiya sitoplazmada boradi.
4.1. Ribosoma — translyatsiyaning molekulyar mashinasi
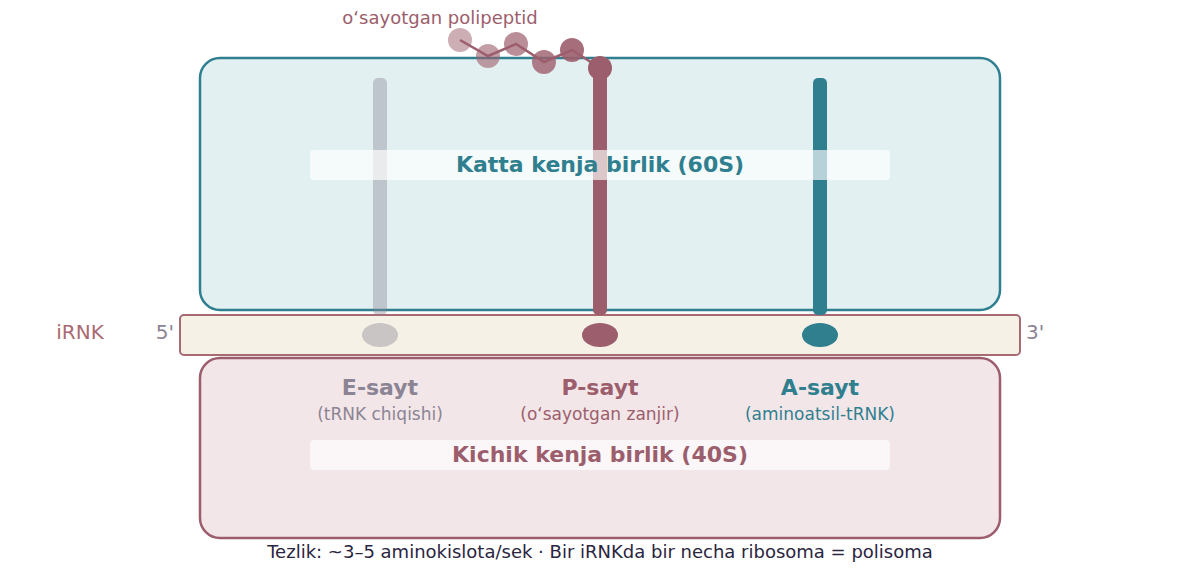
3-rasm. Translyatsiya davridagi eukariot ribosomasi (80S). Katta (60S) va kichik (40S) kenja birliklar iRNK zanjirini o'rab oladi. E-sayt — ishlatilgan tRNK chiqishi; P-sayt — o'sayotgan polipeptid zanjiriga birikkan tRNK; A-sayt — yangi aminoatsil-tRNK kirishi. AIVITA sxemasi.
Ribosoma (ribosome) — rRNK va oqsillardan tashkil topgan ribonukleoproteid zarracha. Eukariotlarda u 80S sedimentatsiya konstantasiga ega va ikki kenja birlikdan iborat:
- Kichik kenja birlik (40S) iRNKni bog‘laydi va kodon–antikodon aniq tanilishini ta’minluvchi dekodlash markazini o‘z ichiga oladi.
- Katta kenja birlik (60S) peptidiltransferaza markazini va tRNK uchun uchta funktsional saytni olib yuradi:
- A-sayt (aminoatsil) — yangi aminoatsil-tRNK birikadigan joy;
- P-sayt (peptidil) — o‘sayotgan polipeptid zanjiriga birikkan tRNK joylashgan o‘rin;
- E-sayt (chiqish) — ishini bajargan tRNK chiqib ketadigan joy.
Peptidiltransferaza katalitik faoliyatini katta kenja birlikning rRNKsi amalga oshiradi — bu ribozim (ribozyme), ya’ni fermentativ faollikka ega RNKning yorqin namunasidir.
4.2. Transport RNK va aminokislotalarni faollashtirish
Transport RNK (tRNA) molekulyar «tarjimon» rolini o‘ynaydi: muayyan aminokislotani olib yuradi va iRNKdagi tegishli kodonga komplementar triplet — antikodon (anticodon) — ni o‘z ichiga oladi.
Translyatsiyadan oldin har bir aminokislota o‘zining tRNKsiga aminoatsil-tRNK sintetaza (aminoacyl-tRNA synthetase) fermenti tomonidan kovalent biriktiriladi. Bu reaktsiya ATF sarfini talab qiladi. Hosil bo‘lgan «tRNK — aminokislota» kompleksi aminoatsil-tRNK deyiladi. Bu bosqichning aniqligi translyatsiya aniqligi uchun hal qiluvchi ahamiyatga ega: ribosoma aminokislotaning o‘zini emas, tRNKning antikodonini «ko‘radi» — shuning uchun aminokislota noto‘g‘ri tRNKga biriktirilsa, ribosoma uni kerakli aminokislota o‘rniga oqsilga qo‘shib qo‘yadi.
4.3. Translyatsiya bosqichlari
Initsiatsiya. Ribosomaning kichik kenja birligi oqsilli initsiatsiya omillari (initiation factors) yordamida iRNKning 5'-kepiga bog‘lanadi va AUG start-kodonini qidira turib ketma-ketlikni «skanerlaydi». AUG topilgach, P-saytga maxsus initsiator metionil-tRNK (metionin tashuvchi tRNK) o‘rnashadi. So‘ng katta kenja birlik birikadi va ribosoma zanjir sinteziga tayyor bo‘ladi. Har qanday yangi polipeptidning N-uchi (birinchi qoldig‘i) har doim metionin bo‘ladi; u ko‘pincha keyingi protsessing davomida ajratib olinadi.
Elongatsiya. Zanjir uzaytirish tsikli har bir aminokislota uchun takrorlanadi:
- Ribosomaning A-saytiga antikodon iRNK kodoni bilan komplementar bo‘lgan aminoatsil-tRNK kiradi.
- Peptidiltransferaza P-saytdagi o‘sayotgan zanjirning karboksil uchi va A-saytdagi aminokislota o‘rtasida peptid bog‘i (peptide bond) hosil bo‘lishini kataliz qiladi.
- Ribosoma aynan bir kodon masofasiga siljiydi (translokatsiya): P-saytdagi tRNK E-saytga o‘tib chiqib ketadi, o‘sayotgan zanjiri bor tRNK P-saytga o‘tadi, A-sayt esa keyingi tsikl uchun bo‘shaydi.
Eukariotlarda translyatsiya tezligi sekundiga taxminan 3–5 aminokislota. Bitta iRNKni bir vaqtning o‘zida bir necha ribosoma translyatsiya qilishi mumkin; bunday kompleks polisoma (polysome) deyiladi va sintez samaradorligini keskin oshiradi.
Terminatsiya. A-saytga stop-kodon (UAA, UAG yoki UGA) tushganda, uni tRNK emas, maxsus oqsillar — terminatsiya omillari (release factors) — taniydi. Peptidiltransferaza polipeptid bilan tRNK o‘rtasidagi bog‘ni gidroliz qiladi: tayyor zanjir ozod bo‘ladi, ribosoma kenja birliklarga dissotsiyalanadi va yangi sintez uchun ishlatilishi mumkin.
5. Oqsillarning translyatsiyadan keyingi modifikatsiyalari
Ozod bo‘lgan polipeptid odatda hali funktsional oqsil emas. U translyatsiyadan keyingi modifikatsiyalarga (post-translational modifications) uchraydi:
- Buklama (folding): zanjir xarakterli uch o‘lchamli tuzilishga ega bo‘ladi. Bunda molekulyar shaperonlar (chaperone) — noto‘g‘ri buklanish va agregatsiyaning oldini oluvchi maxsus oqsillar — faol ishtirok etadi.
- Proteolitik parchalanish: polipeptiddan N-uchidagi metionin yoki kattaroq propeptid ajratib olinadi. Klassik misol — faolsiz proinsulinning C-peptidni ajratib olish orqali yetuk insulinga aylanishi.
- Alohida qoldiqlarning kimyoviy modifikatsiyalari: fosforilanish (fermentlar faolligini boshqarish), glikozilanish (membrana glikoproteinlari), ubikvitinlanish (proteosomali degradatsiya uchun belgilash), asetilanish va boshqa o‘zgarishlar oqsilning faolligini, joylashuvini va barqarorligini boshqaradi.
- Kenja birliklarning birlashishi: ko‘pgina funktsional oqsillar bir necha polipeptid zanjiridan tashkil topgan. Masalan, gemoglobin to‘rtta kenja birlikdan (ikkita α- va ikkita β-zanjir) iborat.
- Nonoqsil (prostetik) guruhlarning birikishi: gemoglobindagi gem, ko‘pgina fermentlardagi metall ionlari va h.k.
6. Gen ekspressiyasini boshqarish
Barcha genlar bir vaqtda va bir xil jaddallikda transkriptsiya qilinmaydi: har bir hujayra turi genetik dasturning faqat bir qismini ishga soladi. Boshqarish bir necha darajada amalga oshiriladi.
- Transkripsiya darajasi (eukariotlarda eng muhimi): boshqarish promotorlar va enhayserlar (enhancer) — DNKning uzoqdagi regulyator ketma-ketliklari — bilan bog‘lanadigan transkripsiya omillari orqali amalga oshiriladi. DNK sitozin qoldiqlarining metillanishi va gistonlar ning kovalent modifikatsiyalari (asetilanish, metillanish) xromatin strukturasini va RNK-polimeraza uchun genlar ochiqligini o‘zgartiradi — bu epigenetika predmeti (batafsil — 10-bobda).
- Transkripsiyadan keyingi daraja: iRNK barqarorligini boshqarish, alternativ spláysing, mikro-RNK orqali translyatsiyani susaytirish.
- Translyatsiya darajasi: initsiatsiya va elongatsiya samaradorligini boshqarish.
- Translyatsiyadan keyingi daraja: tayyor oqsillarning faolligini va degradatsiyasini boshqarish.
Gen ekspressiyasini boshqarishdagi buzilishlar onkologik kasalliklarning (onkogenlarning giperaktivlanishi yoki o‘sma supressorlar genlarining faolsizlanishi) va ko‘plab irsiy kasalliklarning asosini tashkil etadi (12–13-boblarga qarang).
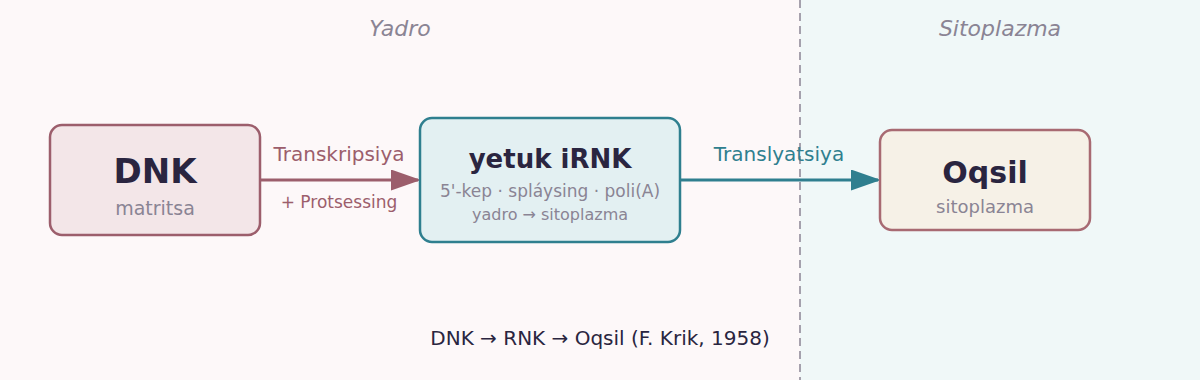
1-rasm. Molekulyar biologiyaning markaziy dogmasi: DNKdan iRNK orqali oqsilgacha genetik ma'lumot yo'li. Transkripsiya va protsessing yadroda, translyatsiya esa sitoplazmada boradi. AIVITA sxemasi.
Klinik ahamiyati
Antibiotiklar — translyatsiya ingibitorlari. Ko‘pgina antibakteriyal preparatlar aynan ribosomalarga ta’sir qiladi. Prokariotik ribosomalar (70S, 30S va 50S kenja birliklar) eukariotik ribosomalardan (80S) tuzilishi bilan farq qilganligi uchun bakteriyalarda oqsil sintezini xo‘jayin hujayrasiga zarar yetkazmagan holda selektiv ravishda to‘sish mumkin. Aminoglikozidlar va tetratsiklin kichik (30S) kenja birlikni; makrolidlar, xloramfenikol va linkozamidlar esa katta (50S) kenja birlikni blokaydi.
Molekulyar diagnostika. Polimeraz zanjir reaktsiyasi (PZR) (polymerase chain reaction, PCR) in vitro DNK replikatsiyasi tamoyiliga asoslangan bo‘lib, spesifik DNK yoki RNK ketma-ketliklarini (teskari transkripsiyadan so‘ng — TT-PZR orqali) aniqlash imkonini beradi. PZR yuqumli kasalliklar, irsiy kasalliklar va onkologiyani diagnostika qilishda benazirdir.
iRNK vaksinalar. iRNK vaksinalarining asosida translyatsiya tamoyili yotadi: hujayralarga patogen antigenini kodlovchi sintetik iRNK kiritiladi. Hujayra ribosomalari antigenni sintez qiladi, bu esa qo‘zg‘atuvchining o‘zini yubormasdan turib immunitet reaktsiyasini ishga soladi.
Nonsens-mutatsiyalar va muddatidan oldingi stop-kodonlar. Bir nukleotidli almashinuvlar kodlovchi kodoni stop-kodonga aylantirishi mumkin (nonsens-mutatsiya, nonsense mutation), bu esa oqsil sintezini o‘rtada to‘xtatadi. Bunday mexanizm bir qator og‘ir irsiy kasalliklarning — sistozli fibrozning ayrim shakllarida, Dyushen mushak distrofiyasida va boshqalarda — asosida yotadi. Tajribaviy «o‘tib ketish» preparatlari (read-through agents) ribosomaga muddatidan oldingi stop-kodonni «o‘tib ketish» imkonini beradi — bu zamonaviy genetik farmakologiyaning bir yo‘nalishi.
Spláysing buzilishlari. Spláysing saytlaridagi mutatsiyalar intronlarning yetuk iRNKga qo‘shilishiga yoki ekzonlarning chiqib ketishiga olib kelishi mumkin, bu esa nuqsonli oqsillar hosil bo‘lishiga sabab bo‘ladi. Spláysing nuqsonlari beta-talassemiyaning ayrim shakllarida va irsiy qon kasalliklarida uchraydi.
RNK interferentsiyasi. RNK interferentsiyasi (RNA interference, RNAi) mexanizmi maqsadli genlarning ekspressiyasini spesifik ravishda susaytirish uchun kichik interferentsiyalovchi RNKlardan foydalanadi. Bu asosda bir qator irsiy va onkologik kasalliklarni davolash uchun terapevtik preparatlar ishlab chiqilmoqda.
O‘z-o‘zini tekshirish uchun savollar
- Molekulyar biologiyaning markaziy dogmasini shakllantiring. Undan qanday istisnolar mavjud?
- Promotor nima va u transkripsiyaning initsiatsiyasida qanday rol o‘ynaydi?
- Eukariotlarda pRNKning transkripsiyadan keyingi protsessigining uch bosqichini sanab o‘ting va har birining ahamiyatini tushuntiring.
- Genetik kod nima? Nima uchun 64 kodon faqat 20 aminokislotani kodlaydi?
- Genetik kodning beshta xossasini ayting va har birini tushuntiring.
- tRNKning translyatsiyadagi roli qanday? Antikodon nima va u kodon bilan qanday o‘zaro ta’sir qiladi?
- Translyatsiyaning uch bosqichini — initsiatsiya, elongatsiya va terminatsiyani — tasvirlab bering.
- Mutatsiya natijasida genning o‘rtasida ma’noli kodon stop-kodonga aylansa, oqsilga nima bo‘ladi?
- Nima uchun prokariotik ribosomalar ingibitorlari — antibiotiklarning — inson hujayralariga zarari yo‘q?
- Alternativ spláysing nima va uning biologik ahamiyati qanday?
- Eukariotlarda gen ekspressiyasini boshqarishning qaysi darajasi (transkripsiya, posttranskripsiya, translyatsiya yoki posttranslyatsiya) asosiy hisoblanadi?
- Transkripsiya yoki translyatsiya tamoyillariga asoslangan biomed texnologiyaga misol keltiring.
Bob AIVITA tomonidan umume’tirof etilgan tibbiy bilimlar asosida, aniq darsliklarni qayta hikoya qilmasdan tayyorlangan. Xato yoki noaniqlik topsangiz — xabar bering; shifokorlar tuzatish taklif qilishi mumkin va u tekshiruvdan so‘ng matnga kiritiladi.