 AIVITA
Медицинская биология и генетика
Глава 9. Хромосомная теория наследственности и генетика пола
Автор: AIVITA
Оценка врачей: Врачи ещё не оценивали книгу
ⓘ Информация не заменяет консультацию врача. Диагноз и лечение назначает только врач.
Хромосомы — не просто структурные элементы ядра: они являются материальными носителями наследственности. Эта глава посвящена тому, как была обоснована хромосомная теория наследственности, каким образом хромосомы определяют пол организма и как наследуются признаки, сцепленные с половыми хромосомами.
1. Хромосомная теория наследственности: история и основные положения
Предпосылки теории
К началу XX века было установлено, что законы Менделя (см. главу 8) объясняются поведением хромосом в мейозе: каждая пара гомологичных хромосом расходится независимо, что соответствует закону независимого расщепления. Однако оставался важный вопрос: что происходит с признаками, гены которых расположены в одной хромосоме?
Томас Хант Морган и его сотрудники в период с 1908 по 1915 год провели серию экспериментов на плодовой мушке Drosophila melanogaster. Этот объект оказался исключительно удобным для генетических исследований: небольшой геном (четыре пары хромосом), короткое поколение (около двух недель), большое потомство. Результаты этих исследований легли в основу хромосомной теории наследственности. В 1933 году Морган был удостоен Нобелевской премии по физиологии и медицине.
Основные положения хромосомной теории
- Гены расположены в хромосомах линейно, занимая определённые места — локусы (locus, мн. ч. loci).
- Гены одной хромосомы образуют группу сцепления (linkage group). Число групп сцепления соответствует гаплоидному набору хромосом вида (у человека — 23 группы).
- Гены одной группы сцепления наследуются совместно чаще, чем гены, расположенные в разных хромосомах.
- Сцепление генов может нарушаться в результате кроссинговера (crossing over) — обмена участками между гомологичными хроматидами в профазе I мейоза.
- Частота кроссинговера между двумя локусами пропорциональна расстоянию между ними и служит основой для построения генетических карт хромосом.
2. Сцепление генов и кроссинговер
Полное и неполное сцепление
Когда два гена расположены в одной хромосоме, они имеют тенденцию передаваться потомству вместе — это явление называют сцеплением генов (gene linkage). Если кроссинговер между ними практически не происходит (гены находятся очень близко), говорят о полном сцеплении: расщепление в потомстве отличается от менделевских соотношений.
При неполном сцеплении между генами всё же происходит обмен участками, и в потомстве появляются как родительские, так и рекомбинантные классы особей. Родительские комбинации встречаются значительно чаще рекомбинантных, что и отличает неполное сцепление от независимого наследования.
Механизм кроссинговера
В профазе I мейоза гомологичные хромосомы тесно сближаются в процессе синапсиса (synapsis), формируя бивалент (bivalent). В точках, называемых хиазмами (chiasmata, ед. ч. chiasma), негомологичные хроматиды обмениваются соответствующими участками. В результате в каждой рекомбинированной хромосоме возникает новое сочетание аллелей — рекомбинация (recombination).
Частота рекомбинации между двумя генами выражается в морганидах (или сантиморганах, сМ): 1 морганида соответствует 1 % рекомбинантных особей в потомстве. Если между двумя генами частота рекомбинации составляет около 50 %, они наследуются независимо, как если бы находились в разных хромосомах, — хотя физически могут располагаться в одной.
Генетические карты хромосом
Используя частоты рекомбинации, строят генетическую карту (genetic map) хромосомы — линейную схему взаимного расположения генов с указанием относительных расстояний между ними. Физические карты, основанные на определении нуклеотидной последовательности ДНК (см. главу 6), дают абсолютные координаты генов в парах оснований. Эти два типа карт нередко показывают схожий порядок генов, однако относительные расстояния в них могут различаться: участки с высокой частотой рекомбинации выглядят на генетической карте более «длинными», чем на физической.
3. Хромосомное определение пола
Типы хромосомного определения пола
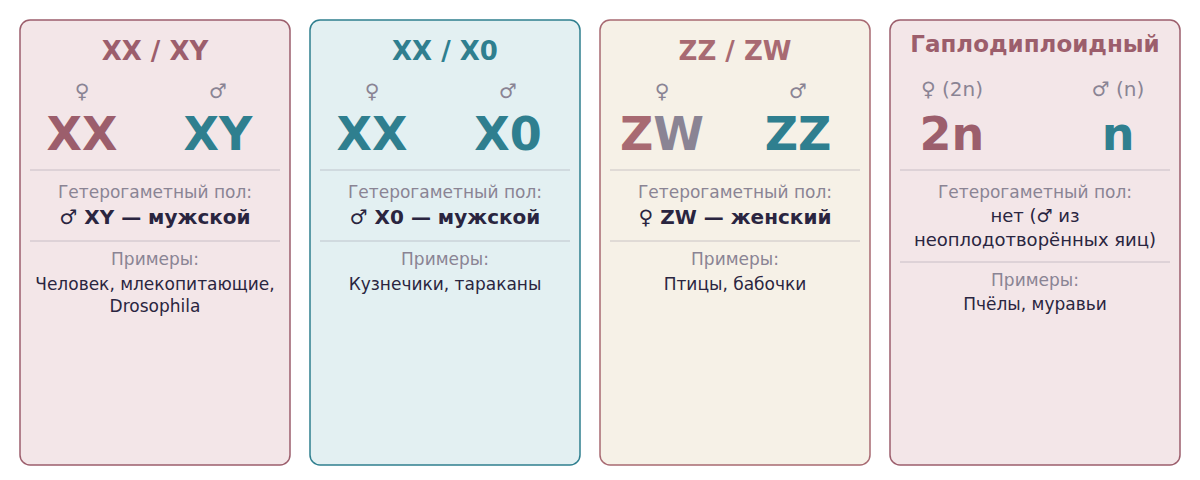
Рис. 1. Типы хромосомного определения пола у животных Схема AIVITA.
У большинства животных пол определяется набором половых хромосом. Различают несколько механизмов:
| Тип | Гетерогаметный пол | Примеры |
|---|---|---|
| XX/XY | мужской (XY) | человек, большинство млекопитающих, Drosophila |
| XX/X0 | мужской (X0) | кузнечики, тараканы |
| ZZ/ZW | женский (ZW) | птицы, бабочки |
| Гаплодиплоидный | — | пчёлы, муравьи |
У человека используется система XX/XY: женщины имеют две X-хромосомы (кариотип 46,XX), мужчины — одну X и одну Y-хромосому (46,XY).
Половые хромосомы человека
X-хромосома — крупная хромосома, содержащая около 800–900 функциональных генов. Большинство из них не имеют соответствующих локусов на Y-хромосоме и кодируют самые разнообразные функции, не связанные непосредственно с определением пола: факторы свёртывания крови VIII и IX, различные ферменты, рецепторы и другие белки.
Y-хромосома значительно меньше X. Она содержит около 50–70 функциональных генов. Ключевую роль в детерминации мужского пола играет ген SRY (sex-determining region of Y), расположенный на коротком плече Y-хромосомы. Белок SRY запускает каскад, направляющий развитие гонад по мужскому пути: формирование семенников, а затем секрецию тестостерона и антимюллерова гормона (см. главу 11). При отсутствии функционального SRY гонады развиваются по женскому пути независимо от хромосомного состава.
X и Y-хромосомы имеют небольшие псевдоаутосомные регионы (pseudoautosomal regions, PAR1 и PAR2), в которых они гомологичны и могут рекомбинировать в мейозе; гены этих регионов наследуются как аутосомные.
Механизм хромосомного определения пола
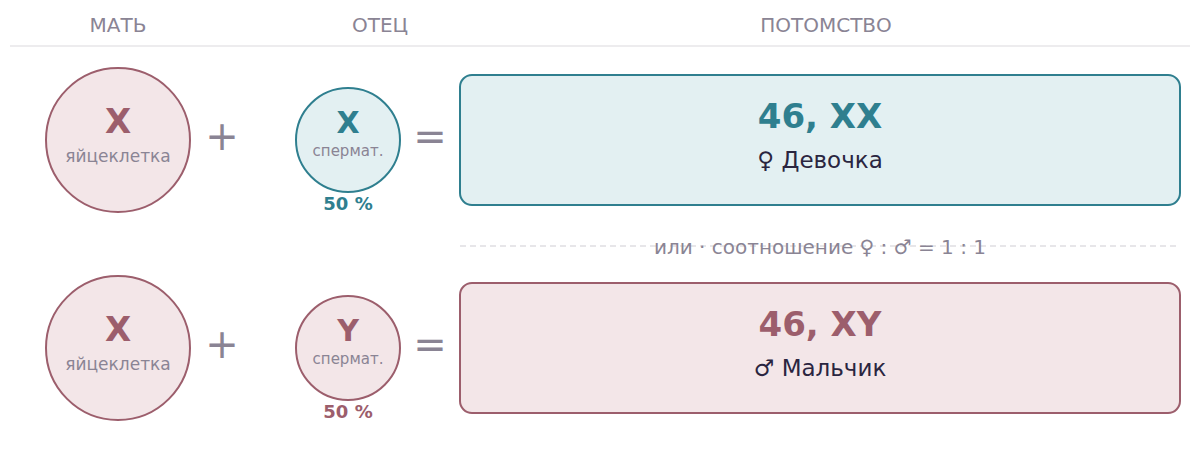
Рис. 2. Механизм хромосомного определения пола у человека Схема AIVITA.
Пол ребёнка определяется в момент оплодотворения. Яйцеклетка содержит одну X-хромосому. Сперматозоиды делятся на два класса: несущие X-хромосому (после оплодотворения образуется 46,XX — девочка) и несущие Y-хромосому (образуется 46,XY — мальчик). В мейозе оба типа сперматозоидов формируются в равных количествах, поэтому теоретическое первичное соотношение полов составляет 1:1.
4. Наследование, сцепленное с полом
Признаки, сцепленные с X-хромосомой
Так как у мужчин имеется только одна X-хромосома, рецессивный аллель X-хромосомы проявится у них фенотипически даже при отсутствии второй копии гена. Мужчин называют гемизиготными (hemizygous) по X-сцепленным генам.
X-сцепленное рецессивное наследование (X-linked recessive inheritance) характеризуется следующим:
- Больные — преимущественно мужчины.
- Мать-носительница (гетерозиготная женщина) передаёт мутантный аллель половине своих сыновей (больные) и половине дочерей (носительницы).
- Отец не передаёт X-сцепленный признак сыновьям: они получают от отца Y-хромосому, а не X.
- Больной отец не имеет больных сыновей, но все его дочери будут носительницами.
Классические примеры — гемофилия A (дефицит фактора VIII свёртывания крови, ген F8) и гемофилия B (дефицит фактора IX, ген F9), а также дальтонизм — нарушение цветового восприятия (гены OPN1LW и OPN1MW). Дальтонизм встречается приблизительно у 8 % мужчин и около 0,5 % женщин европеоидного происхождения.
X-сцепленное доминантное наследование (X-linked dominant inheritance) встречается реже. Больными могут быть и мужчины, и женщины; у мужчин заболевание нередко протекает тяжелее, так как нет второй нормальной копии гена. Пример — X-сцепленная гипофосфатемия (рахит, нечувствительный к витамину D, ген PHEX).
Признаки, сцепленные с Y-хромосомой (голандрические)
Гены, расположенные в неизменяемых участках Y-хромосомы (вне псевдоаутосомных регионов), передаются исключительно от отца всем сыновьям. Такое наследование называют голандрическим (Y-linked). Поскольку функциональных генов на Y-хромосоме мало, клинически значимых голандрических признаков немного. Мутации в генах азооспермического фактора (AZF, участок Y-хромосомы) ведут к нарушению сперматогенеза и мужскому бесплодию.
Признаки, ограниченные полом, и признаки, зависящие от пола
Следует различать три категории признаков:
- Признаки, сцепленные с полом (sex-linked traits) — определяются генами половых хромосом (описаны выше).
- Признаки, ограниченные полом (sex-limited traits) — кодируются аутосомными генами, но проявляются только у одного пола из-за гормональных различий. Например, лактация определяется аутосомными генами, однако реализуется лишь у женщин. Гипертрофия предстательной железы проявляется только у мужчин.
- Признаки, зависящие от пола (sex-influenced traits) — аутосомные гены, у которых пороговое значение или доминантность аллелей различаются у разных полов. Пример: андрогенетическое облысение — ген, который у мужчин ведёт себя как доминантный, а у женщин — как рецессивный.
5. Компенсация дозы генов. Тельце Барра
Проблема дозового дисбаланса
У женщин (46,XX) каждый X-сцепленный ген представлен двумя копиями, а у мужчин (46,XY) — только одной. Если бы оба аллеля у женщин были активны, количество X-кодируемых белков было бы вдвое больше, чем у мужчин. Механизм, выравнивающий экспрессию генов X-хромосомы, называется компенсацией дозы (dosage compensation).
Лайонизация (гипотеза Лайон)
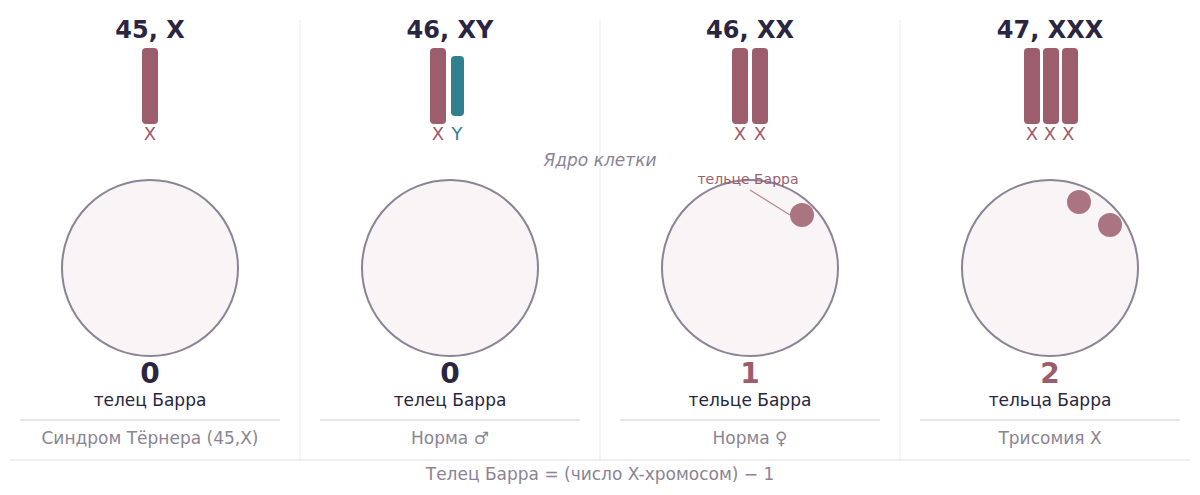
Рис. 3. Тельца Барра и число X-хромосом в ядре клетки Схема AIVITA.
В 1961 году Мэри Лайон предложила гипотезу (ныне подтверждённую экспериментально), согласно которой в каждой соматической клетке женского организма одна из двух X-хромосом инактивируется в раннем эмбриогенезе (у человека — приблизительно на 16–18-й день развития). Выбор — какая из двух X-хромосом станет инактивной — происходит случайно в каждой клетке независимо; затем все клетки-потомки данной клетки сохраняют ту же инактивированную X. Поэтому тело взрослой женщины представляет собой мозаику двух клеточных клонов: в одних активна X-хромосома материнского происхождения, в других — отцовского.
Инактивированная X-хромосома конденсируется в плотную массу гетерохроматина — половой хроматин (sex chromatin), или тельце Барра (Barr body), видимое при световой микроскопии в ядрах клеток слизистой оболочки рта, клеток шейки матки и ряда других тканей. Число телец Барра в клетке равно числу X-хромосом минус единица. У женщины с нормальным кариотипом (46,XX) — 1 тельце Барра; при кариотипе 47,XXX — 2; при 45,X — ни одного.
Инактивация X-хромосомы опосредована некодирующей РНК XIST (X-inactive specific transcript): она покрывает инактивируемую хромосому и инициирует её метилирование и стойкую конденсацию.
Клиническое значение компенсации дозы
Благодаря инактивации X-хромосомы женщины-носительницы X-сцепленных рецессивных мутаций обычно не больны. Однако при «косой» (skewed) инактивации — когда в большинстве клеток активна именно мутантная X — могут возникать субклинические изменения. Так, у части носительниц гемофилии A уровень фактора VIII несколько снижен и выявляется лабораторно.
Определение полового хроматина (тельца Барра) ранее применялось для установления хромосомного пола при нарушениях формирования пола; сегодня предпочтительнее кариотипирование и молекулярные методы (см. главу 13).
6. Генетические основы нарушений полового развития
Пол является многокомпонентным признаком: хромосомный пол определяется набором половых хромосом; гонадный пол — наличием семенников или яичников; гормональный пол — соотношением половых гормонов; фенотипический пол — строением наружных половых органов. В большинстве случаев все компоненты согласованы. Однако их рассогласование составляет основу нарушений полового развития (disorders of sex development, DSD; см. главу 13).
Несколько примеров, иллюстрирующих роль генетических механизмов:
- Синдром нечувствительности к андрогенам: кариотип 46,XY, нормальный ген SRY, однако мутация в гене рецептора андрогенов (AR) делает клетки нечувствительными к тестостерону — формируется женский фенотип при генетически мужском кариотипе.
- Истинный гонадный дисгенез 46,XY (синдром Суайера): функция гена SRY нарушена из-за мутации — гонады остаются в виде тяжей, а фенотип женский.
- Аномалии числа половых хромосом (синдром Клайнфельтера 47,XXY, синдром Тёрнера 45,X и другие) рассматриваются в главе 13.
7. Практические методы изучения хромосомного пола
- Кариотипирование — стандартный метод точного определения хромосомного пола: применяется при планировании беременности высокого риска, при диагностике хромосомных болезней и нарушений полового развития.
- Флуоресцентная гибридизация in situ (FISH) — позволяет быстро определить число копий конкретных хромосом, в том числе X и Y, в интерфазных клетках или на митотических препаратах.
- Половой хроматин (тельце Барра) — ориентировочный метод; ныне практически вытеснен более точными методами.
- Молекулярно-генетические методы — выявление последовательностей SRY и других диагностически важных генов при дифференциальной диагностике нарушений полового развития.
Клиническое значение
Медико-генетическое консультирование. Знание типа сцепления с полом принципиально важно при расчёте генетических рисков. Так, при X-сцепленном рецессивном заболевании у матери-носительницы риск гемофилии A у сыновей составляет 50 %, у дочерей — 50 % носительниц и 50 % здоровых. Пренатальная диагностика позволяет определить пол плода и, при наличии семейной мутации, провести прямую ДНК-диагностику.
Онкология. Инактивация X-хромосомы — один из генетических маркеров клональности опухолей: если в опухоли все клетки имеют одинаково инактивированную X-хромосому, это свидетельствует об их происхождении от одной клетки-предшественницы.
Генная терапия. При разработке векторов для коррекции X-сцепленных болезней (гемофилия, мышечная дистрофия Дюшенна) необходимо учитывать, что у мужчин достаточно одной копии нормального гена, тогда как у женщин ситуацию осложняет лайонизация.
Скрининг и диагностика носительства. При X-сцепленных болезнях молекулярная диагностика носительства позволяет идентифицировать женщин с высоким риском и предложить им консультирование до планирования беременности.
Вопросы для самопроверки
- Сформулируйте основные положения хромосомной теории наследственности.
- Что такое группа сцепления? Сколько групп сцепления у человека?
- Объясните механизм кроссинговера. В какой фазе мейоза он происходит?
- Как частота кроссинговера используется для построения генетических карт хромосом?
- Каков кариотип мужчины и женщины у человека? Чем X-хромосома отличается от Y?
- Какова роль гена SRY в определении пола? Что произойдёт при мутации SRY у плода с кариотипом 46,XY?
- Каков характер наследования X-сцепленного рецессивного признака? Почему мужчины болеют чаще женщин?
- Что такое лайонизация? Почему взрослая женщина является мозаикой по активности X-хромосомы?
- Что такое тельце Барра и сколько их содержит ядро клетки с кариотипом 47,XXX?
- Чем признаки, ограниченные полом, отличаются от признаков, сцепленных с полом? Приведите пример каждого.
- Приведите пример X-сцепленного рецессивного заболевания и объясните риск для потомства матери-носительницы.
- Почему при синдроме нечувствительности к андрогенам кариотип 46,XY сочетается с женским фенотипом?
Глава подготовлена AIVITA по общепризнанным медицинским знаниям, без пересказа конкретных учебников. Если вы нашли ошибку или неточность — сообщите о ней; врачи могут предложить исправление, и после проверки оно будет внесено в текст.