 AIVITA
Медицинская биология и генетика
Глава 3. Строение и функции эукариотической клетки
Автор: AIVITA
Оценка врачей: Врачи ещё не оценивали книгу
ⓘ Информация не заменяет консультацию врача. Диагноз и лечение назначает только врач.
Эукариотическая клетка — основная структурно-функциональная единица всех животных, растений и грибов. В отличие от прокариот, клетки человека содержат оформленное ядро, окружённое двойной мембраной, и многочисленные специализированные органеллы. Принцип, определяющий архитектуру эукариотической клетки, — компартментализация: мембраны делят внутреннее пространство на отсеки, что позволяет вести несовместимые биохимические процессы одновременно и без взаимных помех. Знание устройства клетки необходимо для понимания физиологии тканей, механизмов воспаления, злокачественного роста и действия лекарственных средств.
1. Общие черты эукариотической клетки
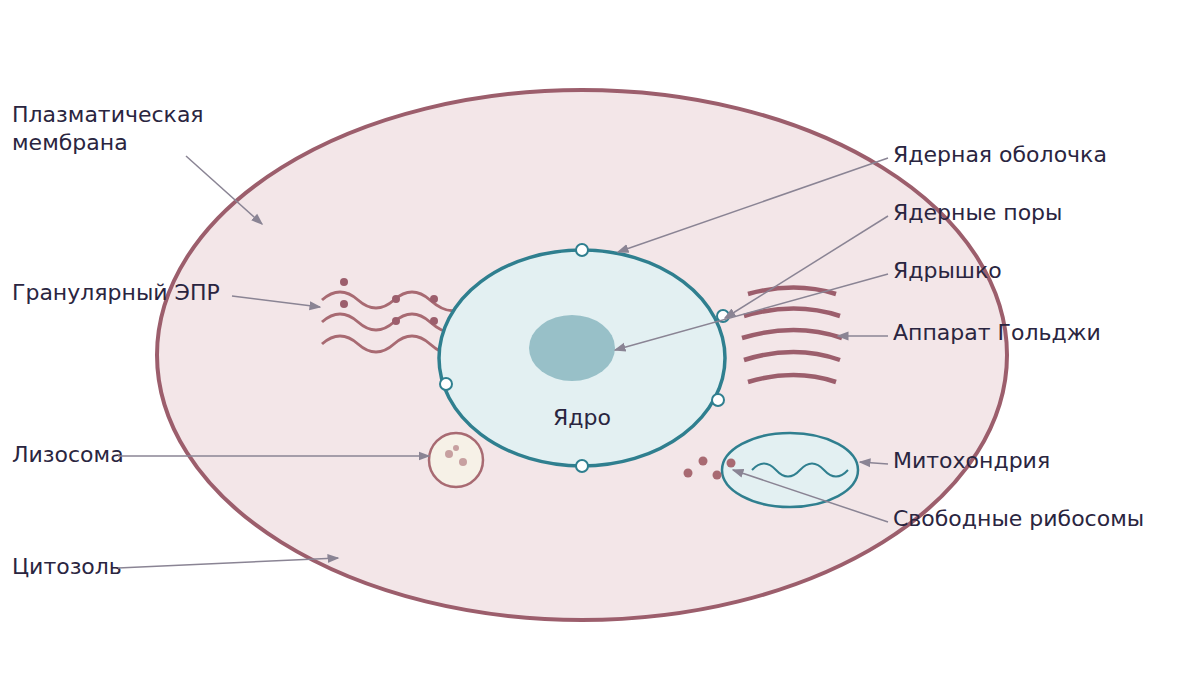
Рис. 1. Общее строение эукариотической клетки: плазматическая мембрана, ядро с ядрышком и ядерными порами, гранулярный ЭПР, аппарат Гольджи, митохондрия, лизосома и свободные рибосомы. Схема AIVITA.
Клетки тела человека чрезвычайно разнообразны по форме и размерам: диаметр эритроцита составляет около 7–8 мкм, длина нейрона с его отростком может достигать нескольких десятков сантиметров, а поперечнополосатое мышечное волокно нередко тянется через всю мышцу. Несмотря на это разнообразие, практически все клетки тела объединяет общий план строения.
Три главных структурных компонента:
- Плазматическая мембрана (membrana plasmatica) — пограничная структура, отделяющая содержимое клетки от внеклеточной среды и обеспечивающая избирательный обмен веществами.
- Цитоплазма (cytoplasma) — внутреннее полужидкое содержимое клетки, исключая ядро; включает цитозоль и органеллы.
- Ядро (nucleus) — хранилище генетической информации и центр управления клеточной активностью.
Эукариотические клетки в среднем в 10–100 раз крупнее бактериальных. Это стало возможным именно благодаря компартментализации: специализированные мембранные органеллы обеспечивают достаточную поверхность для биохимических реакций внутри большой клетки. Принципиальное отличие эукариот от прокариот — наличие ядерной оболочки, отделяющей генетический материал от цитоплазмы, а также мембранных органелл и цитоскелета.
2. Плазматическая мембрана
Плазматическая мембрана (синоним — плазмалемма, plasmalemma) — универсальная пограничная структура, общая для всех живых клеток. Её средняя толщина около 7–10 нм; на электронных микрофотографиях она выглядит как два тёмных слоя, разделённых светлым промежутком («трёхслойный» вид).
Молекулярное строение
Основу мембраны составляет двойной слой фосфолипидов (bilayer phospholipidorum). Каждая молекула фосфолипида имеет гидрофильную «головку» (обращена к водной среде — снаружи и внутри клетки) и два гидрофобных «хвоста» (спрятаны внутрь бислоя). Такое устройство самопроизвольно формируется в водной среде и обеспечивает жидкостность мембраны: липиды могут свободно перемещаться в плоскости своего монослоя.
В мембране встроены белки (об их химической природе — см. главу 2), составляющие около 50% массы мембраны. Они подразделяются на:
- интегральные — пронизывают бислой насквозь (трансмембранные белки); нередко несут канальную, рецепторную или ферментативную функцию;
- периферические — связаны с поверхностью мембраны нековалентными взаимодействиями и легко отделяются.
Холестерол (около 20–25% молекул липидов у животных клеток) встраивается между хвостами фосфолипидов и регулирует текучесть мембраны: снижает её при высокой температуре и повышает при низкой. Это позволяет мембране оставаться функциональной в диапазоне температур тела.
Снаружи плазматической мембраны расположен гликокаликс (glycocalyx) — слой углеводных цепей, ковалентно связанных с мембранными липидами (гликолипиды) и белками (гликопротеины). Гликокаликс участвует в межклеточном узнавании, клеточной адгезии и защите мембраны от механических и химических воздействий.
Описанная картина получила название жидкостно-мозаичной модели мембраны (Сингер и Николсон, 1972), которая с уточнениями остаётся общепринятой.
Функции плазматической мембраны
- Барьерная — разделяет клеточное содержимое и внеклеточную жидкость, поддерживая постоянство внутренней среды клетки.
- Транспортная — регулирует перенос веществ:
- пассивный транспорт (диффузия, осмос, облегчённая диффузия) — по градиенту концентрации, без затрат энергии;
- активный транспорт — против градиента концентрации, с расходом АТФ; например, натрий-калиевый насос (Na⁺/K⁺-АТФаза) поддерживает разность концентраций ионов, необходимую для возбудимости клетки;
- везикулярный транспорт — эндоцитоз (захват частиц или макромолекул путём впячивания мембраны) и экзоцитоз (выброс содержимого секреторных пузырьков).
- Рецепторная — поверхностные рецепторные белки связывают гормоны, цитокины и нейромедиаторы, запуская внутриклеточные сигнальные каскады.
- Адгезивная — белки клеточной адгезии (интегрины, кадгерины) связывают клетки между собой и с компонентами внеклеточного матрикса.
- Антигенная — гликопротеины гликокаликса несут антигены групп крови и тканевой совместимости (HLA-антигены), что определяет иммунный ответ организма.
3. Цитоплазма и органеллы
Цитоплазма (cytoplasma) — содержимое клетки между плазматической мембраной и ядерной оболочкой. Она состоит из цитозоля (cytosol) — водного коллоидного раствора солей, белков и метаболитов — и погружённых в него органелл, включений и цитоскелета. Вязкость цитозоля неоднородна: в зонах активного метаболизма он более жидкий (золь), в других областях — более вязкий (гель).
Эндоплазматический ретикулум
Эндоплазматический ретикулум (reticulum endoplasmaticum, ЭПР) — система уплощённых мешочков (цистерн) и канальцев, пронизывающих цитоплазму. Он является прямым продолжением наружной ядерной мембраны и образует единое замкнутое внутреннее пространство — люмен ЭПР.
Различают два вида:
- Гранулярный (шероховатый) ЭПР — на его цитозольной поверхности расположены рибосомы. Здесь синтезируются белки, предназначенные для секреции, встраивания в мембраны или доставки в лизосомы. После синтеза они поступают в люмен ЭПР, где складываются в пространственную структуру и подвергаются начальному гликозилированию. Гранулярный ЭПР хорошо развит в клетках, активно синтезирующих и секретирующих белки: гепатоцитах, плазматических клетках, ацинарных клетках поджелудочной железы.
- Агранулярный (гладкий) ЭПР — рибосом не имеет. Участвует в синтезе липидов и стероидных гормонов (хорошо развит в клетках коры надпочечников и половых железах), в детоксикации лекарств и ядов (гепатоциты), а также в регуляции концентрации ионов кальция — в мышечных клетках гладкий ЭПР функционирует как кальциевое депо (саркоплазматический ретикулум).
Аппарат Гольджи
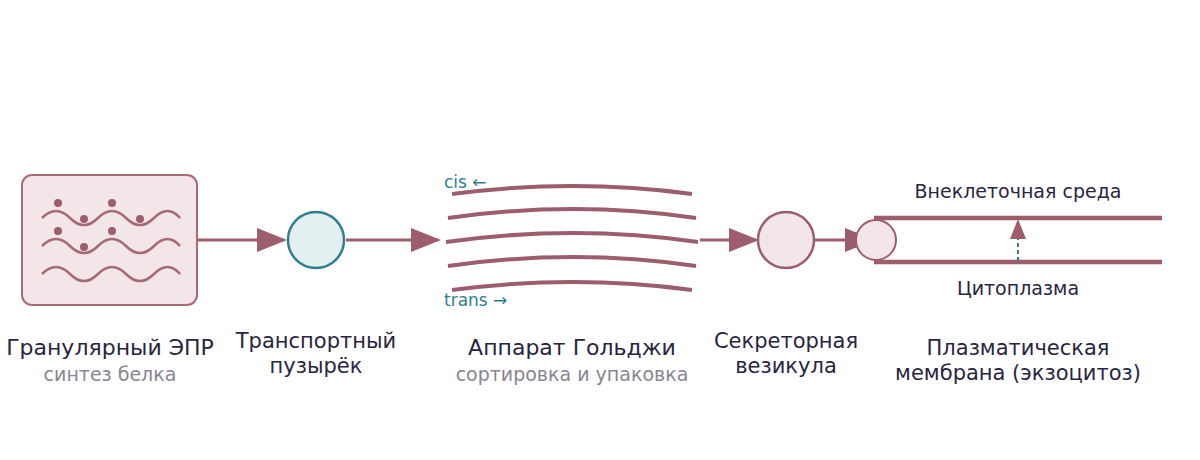
Рис. 2. Секреторный путь клетки: белок синтезируется на рибосомах гранулярного ЭПР, переносится транспортным пузырьком в аппарат Гольджи (cis → trans), где сортируется и упаковывается, затем секреторная везикула доставляет его к плазматической мембране (экзоцитоз). Схема AIVITA.
Аппарат Гольджи (apparatus Golgii) — стопка уплощённых мембранных дисков (цистерн), полярно организованная: цис-сторона обращена к ЭПР и принимает транспортные пузырьки от него, транс-сторона — к плазматической мембране и отпочковывает секреторные везикулы. Основные функции:
- сортировка, химическая модификация (гликозилирование, сульфатирование, фосфорилирование) и упаковка белков, поступающих из ЭПР;
- формирование секреторных везикул, доставляющих белки на поверхность клетки (экзоцитоз);
- образование лизосом.
ЭПР и аппарат Гольджи вместе образуют секреторный путь клетки: белок синтезируется на рибосомах → попадает в люмен ЭПР → транспортируется в аппарат Гольджи → сортируется и упаковывается → доставляется к месту назначения.
Лизосомы и пероксисомы
Лизосомы (lysosomae) — мембранные органеллы, содержащие около 50 видов гидролитических ферментов, активных при кислой реакции (рН около 4,5–5). Мембрана лизосомы надёжно отделяет эти ферменты от цитозоля, защищая клетку от саморазрушения. Функции:
- гетерофагия — переваривание захваченных извне веществ и микроорганизмов (используется макрофагами и нейтрофилами при фагоцитозе);
- аутофагия — переваривание устаревших органелл самой клетки при участии аутофагосом; важный механизм клеточного обновления.
Нарушение работы лизосомальных ферментов приводит к лизосомным болезням накопления — группе наследственных заболеваний, при которых непереваренные субстраты накапливаются в клетках и повреждают их (см. главу 12).
Пероксисомы (peroxysomae) — небольшие мембранные органеллы, содержащие оксидазы и каталазу. В них происходит β-окисление очень длинноцепочечных жирных кислот и расщепление токсичного пероксида водорода (H₂O₂), образующегося в ходе окислительных реакций. Особенно много пероксисом в гепатоцитах и клетках проксимальных канальцев почек.
Митохондрии
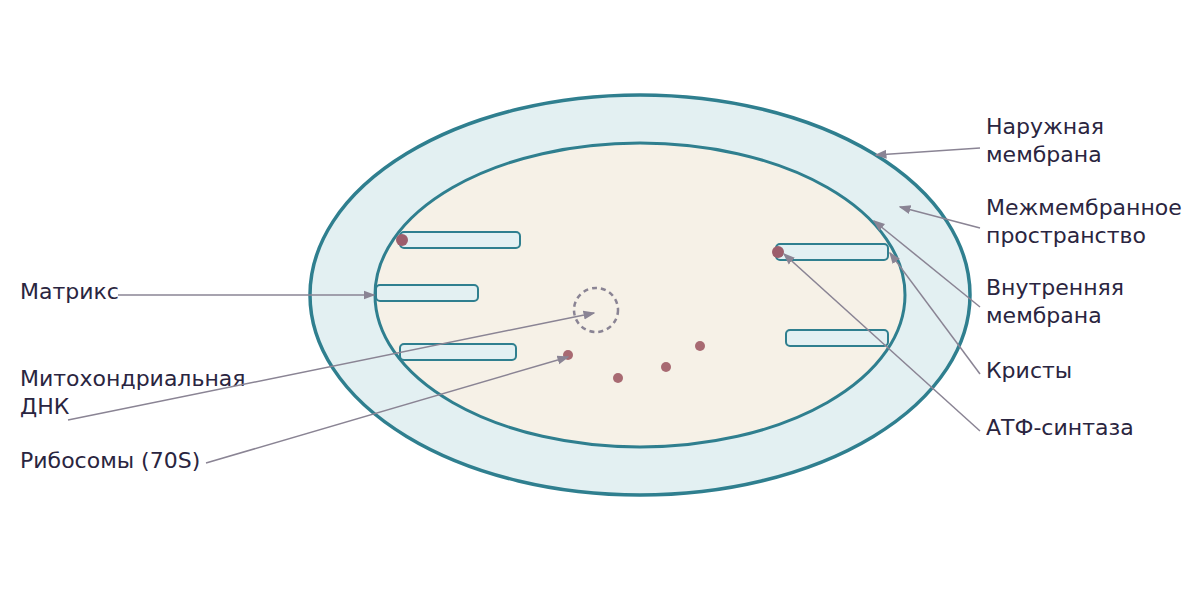
Рис. 3. Строение митохондрии в поперечном разрезе: наружная мембрана, межмембранное пространство, внутренняя мембрана с кристами (на которых расположена АТФ-синтаза), матрикс с кольцевой митохондриальной ДНК и рибосомами 70S. Схема AIVITA.
Митохондрии (mitochondria) — органеллы, производящие большую часть АТФ в клетке путём окислительного фосфорилирования. Их число в клетке варьирует от единиц до нескольких тысяч: клетки с высоким энергопотреблением (кардиомиоциты, гепатоциты, клетки проксимальных канальцев почек) содержат их особенно много.
Строение. Митохондрия окружена двумя мембранами:
- Наружная мембрана гладкая, проницаема для небольших молекул благодаря белкам-поринам.
- Внутренняя мембрана непроницаема для протонов и образует глубокие складки — кристы (cristae), многократно увеличивающие её площадь. На кристах расположены белковые комплексы цепи переноса электронов и фермент АТФ-синтаза.
Пространство между двумя мембранами называется межмембранным (spatium intermembranale), а внутреннее пространство, ограниченное внутренней мембраной, — матриксом (matrix). В матриксе содержатся ферменты цикла Кребса, митохондриальная ДНК (кольцевая, как у прокариот) и рибосомы митохондриального типа (70S).
Наличие собственного генома и рибосом, а также сходство с бактериями легли в основу эндосимбиотической теории: митохондрии произошли от древних аэробных бактерий, поглощённых клеткой-хозяином на ранних этапах эволюции. Митохондриальная ДНК передаётся исключительно по материнской линии (см. главу 12).
Рибосомы
Рибосомы (ribosomae) — органеллы, не имеющие мембраны, построенные из рибосомных РНК и белков; являются молекулярными машинами трансляции (подробно — см. главу 7). В цитоплазме эукариот рибосомы имеют константу седиментации 80S (состоят из большой 60S и малой 40S субъединиц) и могут быть:
- свободными в цитозоле — синтезируют белки для нужд самой клетки (ферменты, белки цитоскелета и т. д.);
- связанными с мембраной гранулярного ЭПР — синтезируют белки, предназначенные для секреции или встраивания в мембраны.
Цитоскелет
Цитоскелет (cytosceletus) — динамическая внутренняя опора клетки, образованная тремя системами белковых полимеров:
| Компонент | Диаметр | Основные белки | Главные функции |
|---|---|---|---|
| Микрофиламенты (microfilamenta) | ~7 нм | Актин | Движение клетки, фагоцитоз, клеточное деление (контрактильное кольцо), формирование микроворсинок |
| Промежуточные филаменты (filamenta intermedia) | ~10 нм | Кератин, виментин, десмин, ламин | Механическая прочность, фиксация ядра и органелл |
| Микротрубочки (microtubuli) | ~25 нм | α- и β-тубулин | Движение органелл и везикул, митотическое веретено, структура ресничек и жгутиков |
Динамика цитоскелета регулируется сигнальными молекулами. Актиновая сеть перестраивается при миграции клетки, образовании псевдоподий и фагоцитозе; микротрубочки разбираются и собираются вновь при делении клетки (см. главу 4).
Клеточный центр
Клеточный центр (centrosome) состоит из двух центриолей (centrioli) — цилиндрических структур диаметром около 0,2 мкм, стенка которых образована девятью триплетами микротрубочек (формула «9×3»), — и окружающего перицентриолярного матрикса. Клеточный центр — главный центр организации микротрубочек в неделящейся клетке; при делении от него расходится митотическое веретено (см. главу 4). Базальные тельца ресничек и жгутиков по структуре аналогичны центриолям.
4. Ядро клетки
Ядро (nucleus) — крупнейшая органелла эукариотической клетки; в клетках человека оно составляет около 10% объёма клетки, имеет в среднем 5–10 мкм в диаметре. Большинство клеток содержат одно ядро; исключения — поперечнополосатые мышечные волокна (многоядерные симпласты) и зрелые эритроциты (полностью лишены ядра).
Ядерная оболочка
Ядерная оболочка (involucrum nuclei) состоит из двух параллельных мембран; наружная является прямым продолжением шероховатого ЭПР. Пространство между мембранами — перинуклеарная цистерна (cisterna perinuclearis) — сообщается с люменом ЭПР.
В ядерной оболочке расположены ядерные поры (pori nucleares) — сложные белковые комплексы диаметром около 120 нм, через которые осуществляется двусторонний избирательный транспорт: мРНК, рРНК и субъединицы рибосом выходят в цитоплазму, факторы транскрипции, гистоны и нуклеотиды поступают в ядро. На внутренней поверхности оболочки расположена ядерная ламина (lamina nuclei) — сеть промежуточных филаментов из белков-ламинов; она поддерживает форму ядра и участвует в прикреплении хроматина к оболочке.
Хроматин
Хроматин (chromatinum) — комплекс ДНК с белками-гистонами, заполняющий ядро делящейся и неделящейся клетки (подробно о структуре ДНК — см. главу 6). В зависимости от степени упаковки различают:
- эухроматин (euchromatinum) — рыхло упакованный, транскрипционно активный участок; на окрашенных гистологических препаратах выглядит светлее;
- гетерохроматин (heterochromatinum) — плотно упакованный, транскрипционно неактивный; окрашивается интенсивнее (тёмные глыбки у ядерной оболочки).
Половой хроматин (тельце Барра) — конденсированная неактивная X-хромосома в соматических клетках женщин — является разновидностью факультативного гетерохроматина и используется в диагностике хромосомных болезней (см. главу 9).
Ядрышко
Ядрышко (nucleolus) — структура внутри ядра, видимая в световой микроскоп; не имеет собственной мембраны. Это место синтеза рибосомной РНК (рРНК) и первичной сборки субъединиц рибосом. По микроскопической картине в ядрышке различают две зоны: плотную (pars compacta) — с высокой концентрацией РНК — и менее плотную (pars granulosa) — зону предрибосомных частиц. Размеры ядрышка коррелируют с белковосинтетической активностью клетки: в быстро делящихся клетках и клетках, активно секретирующих белки, ядрышко крупное; в малоактивных клетках оно невелико. В одном ядре может быть одно или несколько ядрышек.
Ядерный матрикс
Ядро заполнено полужидким ядерным матриксом (matrix nuclei) — коллоидным раствором белков и РНК, который образует своеобразный внутренний каркас ядра. Матрикс обеспечивает организацию хроматина в пространстве ядра и создаёт микросреду для репликации ДНК и транскрипции.
5. Поверхностные специализации клетки
Плазматическая мембрана клеток может образовывать специализированные структуры, многократно увеличивающие её поверхность или выполняющие особые функции.
- Микроворсинки (microvilli) — выступы мембраны длиной 0,5–1,5 мкм, содержащие пучок актиновых микрофиламентов; многократно увеличивают площадь всасывания в кишечном эпителии (так называемая щёточная каёмка, limbus penicillatus).
- Реснички (cilia) — длинные (5–10 мкм) подвижные выросты, аксонема которых имеет характерную структуру «9+2» (девять периферических дублетов микротрубочек и две центральные); обеспечивают движение содержимого над поверхностью клетки (мерцательный эпителий дыхательных путей и маточных труб).
- Жгутики (flagella) — аналогичны ресничкам по строению, но значительно длиннее; у человека представлены жгутиком сперматозоида.
- Межклеточные контакты — специализированные структуры, обеспечивающие механическое сцепление клеток и обмен ионами: плотный контакт (zonula occludens) — непроницаемый барьер; адгезивный поясок (zonula adhaerens) и десмосома (desmosoma) — механические контакты; щелевой контакт (нексус) (connexus) — ионный канал, связывающий цитоплазму соседних клеток.
6. Включения клетки
Включения (inclusiones) — непостоянные компоненты цитоплазмы, образующиеся и расходующиеся в ходе жизнедеятельности клетки. Они отличаются от органелл тем, что не являются постоянными структурами. К ним относятся:
- трофические (питательные) — гликоген (гепатоциты, мышечные клетки), жировые капли (адипоциты);
- секреторные — гранулы с белковым содержимым (ацинарные клетки поджелудочной железы, тучные клетки);
- пигментные — меланин (меланоциты), гемосидерин (макрофаги).
Включения не окружены собственной замкнутой мембраной, хотя жировые капли имеют монослой фосфолипидов и слой регуляторных белков-перилипинов на поверхности.
Объём трофических включений отражает метаболическое состояние организма. При голодании запасы гликогена в гепатоцитах резко сокращаются; при ожирении число и размер жировых включений адипоцитов увеличиваются. Пигментные включения имеют диагностическое значение: скопление гемосидерина в альвеолярных макрофагах («клетки сердечных пороков») указывает на хронический венозный застой в лёгких.
Клиническое значение
Мембрана и наследственные болезни транспорта
Нарушения мембранных транспортных белков лежат в основе многих генетических болезней. Мутации в гене CFTR (хлорный канал) вызывают муковисцидоз — одно из наиболее частых аутосомно-рецессивных заболеваний в европейских популяциях. Вязкая слизь в дыхательных путях и поджелудочной железе является прямым следствием нарушения хлорного транспорта через эпителиальную мембрану. Дефекты натрий-зависимых переносчиков приводят к нарушениям всасывания аминокислот и глюкозы. Нарушения структуры спектрина и анкирина — белков, связывающих цитоскелет с мембраной эритроцита, — вызывают наследственный сфероцитоз: эритроциты приобретают сферическую форму и преждевременно разрушаются в селезёнке, что проявляется гемолитической анемией.
Митохондрии и митохондриальные болезни
Мутации митохондриальной ДНК вызывают редкие, но тяжёлые системные заболевания с преимущественным поражением тканей с высокими энергетическими потребностями — мышц и головного мозга (митохондриальные миопатии, синдром MELAS и другие; см. главу 12). Поскольку митохондриальная ДНК передаётся только по матери, эти болезни наследуются исключительно по материнской линии: все дети поражённой матери наследуют мутацию, тогда как дети поражённого отца — нет.
Лизосомы и болезни накопления
Недостаточность конкретного лизосомального фермента нарушает расщепление соответствующего субстрата — гликогена, сфинголипидов, гликозаминогликанов. Непереваренное вещество накапливается в лизосомах и постепенно разрушает клетку. Примеры: болезнь Гоше (недостаточность глюкоцереброзидазы), болезнь Тея–Сакса (гексозаминидаза А), болезнь Ниманна–Пика, мукополисахаридозы. Большинство этих болезней наследуется аутосомно-рецессивно (см. главу 12).
Ядро и онкология
Злокачественные клетки нередко демонстрируют хорошо заметные изменения ядра: его увеличение, нарушение ядерно-цитоплазматического соотношения, неправильность контуров, крупные и неправильной формы ядрышки и патологические митозы. Эти морфологические признаки используются в гистопатологической диагностике рака. Нарушение структуры ламинов ядерной оболочки (ламинопатии), в частности мутации в гене LMNA, вызывают прогерию (синдром Хатчинсона–Гилфорда) — преждевременное старение — и ряд форм мышечных дистрофий.
Цитоскелет и двигательные нарушения
Первичная цилиарная дискинезия — болезнь, обусловленная дефектами белков аксонемы (структуры ресничек и жгутиков). Нарушается движение ресничек эпителия дыхательных путей, что ведёт к хроническим бронхитам и бронхоэктазам. При синдроме Картагенера к этим изменениям добавляется обратное расположение внутренних органов (situs inversus), что объясняется нарушением реснитчатого движения в эмбриональном периоде, которое в норме определяет латерализацию органов.
Вопросы для самопроверки
- Чем эукариотическая клетка принципиально отличается от прокариотической? Почему это различие важно для понимания клеточных болезней?
- Объясните строение плазматической мембраны согласно жидкостно-мозаичной модели. Какую роль играет холестерол?
- Какие механизмы транспорта веществ через мембрану вы знаете? Приведите пример для каждого из них.
- В чём различие между гранулярным и агранулярным ЭПР по структуре и функции?
- Опишите путь секреторного белка от синтеза до выхода из клетки: какие органеллы он последовательно проходит?
- Перечислите три компонента цитоскелета, укажите диаметр и основную функцию каждого.
- Каково строение митохондрии? Почему в митохондриях есть собственная ДНК?
- Что такое ядерная ламина и какие болезни возникают при дефектах её белков?
- Чем эухроматин отличается от гетерохроматина и какое значение это имеет для экспрессии генов (см. главу 7)?
- Какова роль лизосом в клетке и что происходит при дефиците лизосомальных ферментов?
- Объясните связь между размером ядрышка и метаболической активностью клетки.
- Назовите два наследственных заболевания, в основе которых лежит дефект мембранных белков.
Глава подготовлена AIVITA по общепризнанным медицинским знаниям, без пересказа конкретных учебников. Если вы нашли ошибку или неточность — сообщите о ней; врачи могут предложить исправление, и после проверки оно будет внесено в текст.